Nội dung chính
- Đặt vấn đề
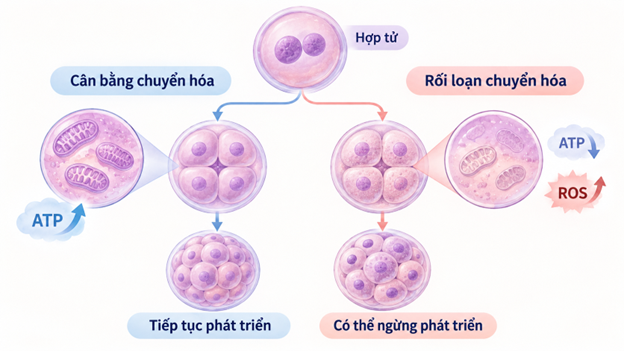
Trong quá trình phát triển tiền làm tổ, phôi không chỉ trải qua những lần phân chia liên tiếp mà còn có sự thay đổi về cấu trúc và chức năng của các phôi bào. Từ giai đoạn tám tế bào, quá trình nén phôi bắt đầu diễn ra, đi kèm với sự hình thành tính phân cực và những khác biệt đầu tiên giữa các tế bào bên trong và bên ngoài phôi. Đây là những bước quan trọng để thiết lập các dòng tế bào và hình thành khoang phôi nang. Tuy nhiên, trên thực tế, một số phôi vẫn ngừng phát triển sau khi đạt giai đoạn tám tế bào hoặc phôi dâu, không thể tiếp tục hình thành phôi nang. Điều này cho thấy sự phát triển của phôi không chỉ phụ thuộc vào khả năng phân chia mà còn đòi hỏi sự phối hợp chặt chẽ giữa các quá trình tổ chức tế bào, thiết lập tính phân cực và biệt hóa[1].
Trong những năm gần đây, stress lưới nội chất được quan tâm như một trong những cơ chế có thể liên quan đến hiện tượng phôi ngừng phát triển, đặc biệt ở giai đoạn chuyển tiếp từ phôi dâu sang phôi nang. Các nghiên cứu trên phôi người ghi nhận sự gia tăng biểu hiện của những protein liên quan đến đáp ứng stress lưới nội chất, đồng thời giảm biểu hiện các protein tham gia thiết lập tính phân cực và liên kết giữa các phôi bào. Những thay đổi này gợi ý rằng rối loạn chức năng lưới nội chất có thể ảnh hưởng đến quá trình tổ chức tế bào và hình thành phôi nang. Tuy nhiên, hiện chưa xác định được liệu stress lưới nội chất xuất hiện trước khi phôi ngừng phát triển hay là hệ quả của những bất thường đã xảy ra.
- Lưới nội chất tham gia những hoạt động nào của phôi?
Lưới nội chất là hệ thống màng nội bào tham gia tổng hợp, gấp cuộn và kiểm soát chất lượng của nhiều protein. Đối với protein tiết và protein màng, việc đạt cấu trúc thích hợp là điều kiện cần trước khi được vận chuyển đến vị trí hoạt động. Lưới nội chất còn tham gia điều hòa canxi, tổng hợp lipid và phối hợp với các bào quan khác. Do đó, chức năng của bào quan này liên quan đến cả hoạt động nội bào lẫn sự tương tác giữa các tế bào[2].
Trong những giai đoạn phát triển đầu tiên, phôi chủ yếu sử dụng các thành phần được dự trữ từ noãn, trước khi hoạt động của bộ gen phôi dần được thiết lập. Khi chuyển từ giai đoạn phân chia sang nén phôi và hình thành phôi nang, nhu cầu tổng hợp và xử lý các protein tham gia kết dính tế bào, thiết lập tính phân cực và tổ chức bộ khung tế bào ngày càng trở nên quan trọng. Quá trình này đòi hỏi sự phối hợp chặt chẽ giữa hoạt động tổng hợp, gấp cuộn và vận chuyển protein đến đúng vị trí trong tế bào. Vì vậy, những rối loạn trong quá trình kiểm soát chất lượng protein có thể ảnh hưởng đến sự tổ chức và liên kết giữa các phôi bào, từ đó cản trở quá trình hình thành phôi nang ngay cả khi phôi vẫn tiếp tục phân chia[2,3].
Stress lưới nội chất xảy ra khi sự tích tụ các protein chưa được gấp cuộn đúng cấu trúc vượt quá khả năng xử lý của lưới nội chất, hoặc khi những thay đổi trong môi trường nội bào làm gián đoạn chức năng của bào quan này. Trước tình trạng đó, tế bào kích hoạt các cơ chế đáp ứng nhằm tăng khả năng gấp cuộn, xử lý và loại bỏ protein bất thường để khôi phục cân bằng nội bào. Vì vậy, stress lưới nội chất không nhất thiết dẫn đến tổn thương tế bào mà có thể là một đáp ứng thích nghi, tùy thuộc vào mức độ và thời gian kéo dài của tình trạng stress[2].
- Đáp ứng với protein gấp cuộn sai: cơ chế thích nghi và giới hạn
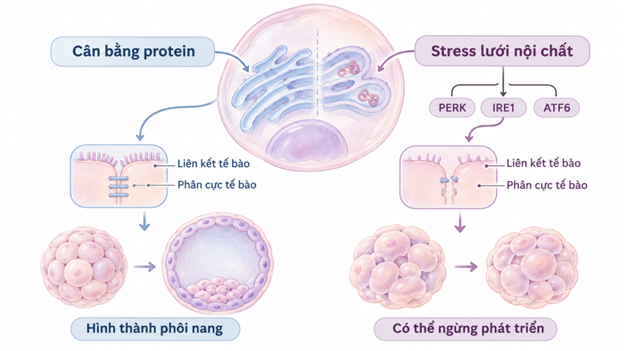
Khi lượng protein chưa được gấp cuộn đúng cấu trúc tích tụ vượt quá khả năng xử lý của lưới nội chất, tế bào sẽ kích hoạt đáp ứng với protein chưa gấp cuộn (unfolded protein response – UPR) nhằm khôi phục cân bằng nội bào. Đáp ứng này được điều hòa chủ yếu thông qua ba nhánh tín hiệu PERK, IRE1 và ATF6, có vai trò giảm gánh nặng tổng hợp protein, tăng cường khả năng gấp cuộn và thúc đẩy loại bỏ các protein bất thường. Ở giai đoạn đầu, UPR đóng vai trò như một cơ chế bảo vệ, giúp tế bào thích nghi với tình trạng stress và duy trì chức năng của lưới nội chất. Tuy nhiên, khi stress kéo dài hoặc vượt quá khả năng thích nghi, đáp ứng này có thể chuyển sang kích hoạt các con đường liên quan đến tổn thương và chết tế bào[2].
Ba nhánh tín hiệu PERK, IRE1 và ATF6 tham gia điều hòa đáp ứng stress lưới nội chất thông qua những cơ chế khác nhau. Trong đó, PERK làm giảm quá trình dịch mã thông qua phosphoryl hóa eIF2α, đồng thời thúc đẩy biểu hiện các yếu tố đáp ứng stress như ATF4. Khi tình trạng stress kéo dài, sự gia tăng biểu hiện CHOP có thể góp phần kích hoạt các con đường liên quan đến chết tế bào. Nhánh IRE1 tham gia điều hòa quá trình cắt nối RNA thông tin của XBP1, qua đó tăng cường khả năng gấp cuộn và xử lý protein. Trong khi đó, ATF6 thúc đẩy biểu hiện các protein hỗ trợ gấp cuộn, điển hình là GRP78/BiP. Tuy nhiên, mức độ hoạt hóa của từng nhánh có thể khác nhau tùy thuộc vào loại tế bào, mức độ và thời gian kéo dài của stress.
Do UPR vừa tham gia bảo vệ tế bào vừa có thể thúc đẩy các đáp ứng bất lợi khi stress kéo dài, sự gia tăng biểu hiện của một dấu ấn riêng lẻ chưa đủ để đánh giá mức độ tổn thương tế bào. Vì vậy, việc xác định ý nghĩa của stress lưới nội chất cần dựa trên sự kết hợp giữa các dấu ấn phân tử, trạng thái hoạt động của tế bào và diễn tiến phát triển của phôi [2].
Ở phôi trước làm tổ, sự cân bằng trong quá trình tổng hợp và xử lý protein có thể chịu ảnh hưởng từ cả những thay đổi nội tại của phôi và điều kiện môi trường nuôi cấy. Trong đó, sự gia tăng nhu cầu tổng hợp protein, quá trình biệt hóa tế bào, những biến đổi về trạng thái oxy hóa–khử và cân bằng canxi nội bào đều có thể ảnh hưởng đến chức năng của lưới nội chất. Khi các yếu tố này làm gián đoạn quá trình gấp cuộn và kiểm soát chất lượng protein, đáp ứng stress lưới nội chất có thể được kích hoạt. Tuy nhiên, phần lớn những cơ chế trên được nghiên cứu ở các mô hình tế bào khác và chưa được xác nhận đầy đủ trên phôi người. Vì vậy, sự gia tăng các dấu ấn UPR chưa đủ cơ sở để kết luận rằng stress lưới nội chất bắt nguồn từ thành phần môi trường nuôi cấy hoặc một thao tác cụ thể trong labo IVF[2].
- Bằng chứng mới trên phôi người ngừng phát triển
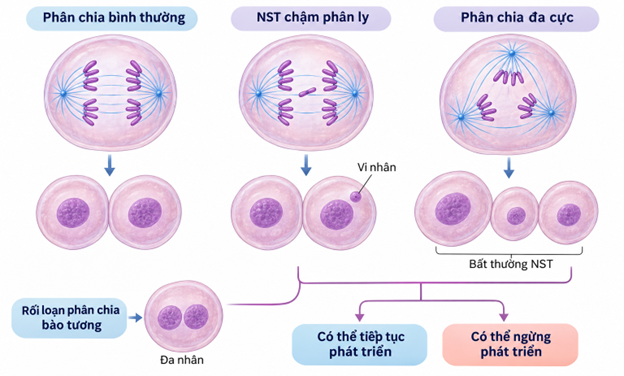
Trong nghiên cứu công bố năm 2026 trên tạp chí Cell, Li và cộng sự sử dụng hệ thống ghi hình trực tiếp để theo dõi sự phân chia của khoảng 150 phôi người và phôi khỉ trong tối đa năm ngày. Kết quả cho thấy những phôi ngừng phát triển ở giai đoạn sớm thường có biểu hiện sai sót phân ly nhiễm sắc thể. Ngược lại, ở nhóm ngừng tại giai đoạn phôi dâu, nhóm nghiên cứu không ghi nhận sự liên hệ rõ ràng tương tự với sai sót phân ly nhiễm sắc thể. Sự khác biệt theo giai đoạn đặt ra khả năng rằng việc không hình thành phôi nang có thể liên quan đến những cơ chế khác ngoài bất thường nguyên phân[3].
Để khảo sát sâu hơn, nhóm tác giả phân tích protein riêng lẻ của 8 phôi dâu người ngừng phát triển và 13 phôi nang. So với phôi nang, nhóm phôi dâu ngừng phát triển có khoảng 250 protein tăng biểu hiện và 350 protein giảm biểu hiện theo tiêu chí phân tích của nghiên cứu. Những protein tăng chủ yếu liên quan đến đáp ứng stress lưới nội chất và hệ thống màng nội bào. Trong khi đó, các protein giảm tập trung ở những quá trình cần thiết cho hình thành phôi nang, đặc biệt là thiết lập tính phân cực và liên kết giữa các tế bào. Một số protein được ghi nhận gồm TJP2, OCLN, PARD6B, PRKCI và YAP1[3].
Sự thay đổi đồng thời của các protein liên quan stress và tổ chức tế bào gợi ý một cơ chế đáng quan tâm ở giai đoạn phôi dâu. Tuy nhiên, số lượng phôi được phân tích còn nhỏ và các mẫu đã ngừng phát triển khi được đánh giá. Vì vậy, nghiên cứu chưa xác định được stress lưới nội chất xuất hiện từ khi nào, hoặc đây là rối loạn khởi đầu hay biến đổi đi kèm. Không thể suy rộng kết quả thành một cơ chế chung cho mọi phôi dâu ngừng phát triển[3].
Nhằm kiểm tra khả năng tái hiện những biến đổi này, Li và cộng sự xử lý phôi dâu chuột bằng tunicamycin, một chất ức chế quá trình glycosyl hóa protein và có khả năng gây stress lưới nội chất. Sau can thiệp, phôi chuột xuất hiện tăng tín hiệu GRP78, đồng thời giảm các protein liên quan đến tính phân cực và liên kết tế bào như PARD6B và TJP2. Phân tích protein trên 6 phôi chuột được xử lý và 6 phôi đối chứng cũng cho thấy những thay đổi tương đồng với nhóm phôi dâu người ngừng phát triển. Điều này củng cố giả thuyết rằng rối loạn cân bằng protein có thể ảnh hưởng đến sự chuyển tiếp từ phôi dâu sang phôi nang[3].
Tuy nhiên, tunicamycin không chỉ tạo ra đáp ứng stress mà còn trực tiếp ngăn cản việc gắn chuỗi đường vào protein. Vì glycosyl hóa cũng cần thiết cho hoạt động của nhiều protein màng, một phần rối loạn kết dính tế bào có thể xuất phát từ tác động trực tiếp của chất này. Nghiên cứu trên phôi chuột từ năm 1979 đã cho thấy tunicamycin có thể cản trở quá trình nén phôi dù không làm gián đoạn ngay các lần phân chia sớm[4]. Do đó, kết quả từ mô hình sử dụng tunicamycin cần được diễn giải như bằng chứng thực nghiệm hỗ trợ cơ chế, không phải sự xác nhận đầy đủ đường tác động trên phôi người.
- Stress lưới nội chất có thể ảnh hưởng thế nào đến hình thành phôi nang?
Sự hình thành phôi nang phụ thuộc vào hai quá trình liên quan chặt chẽ: thiết lập tính phân cực của các phôi bào và hình thành những liên kết giúp lớp tế bào lá nuôi duy trì tính toàn vẹn. Khi phôi nén, các tế bào ngoài dần có đặc điểm khác với tế bào bên trong. Những liên kết kín giữa các tế bào ngoài, cùng hoạt động vận chuyển ion và nước, góp phần tạo ra khoang phôi nang. Vì vậy, một phôi vẫn có số lượng tế bào tương đối phù hợp nhưng không thiết lập được hàng rào tế bào ngoài có thể gặp khó khăn trong quá trình tạo và duy trì khoang phôi[3].
TJP2 và OCLN tham gia cấu trúc liên kết kín, trong khi PARD6B và PRKCI liên quan đến tính phân cực tế bào,YAP1 góp phần điều hòa các chương trình biệt hóa theo vị trí tế bào. Những protein này giảm biểu hiện ở các phôi dâu ngừng phát triển trong nghiên cứu Li và cộng sự. Sự suy giảm đồng thời có thể ảnh hưởng đến quá trình tổ chức mô, nhưng chưa xác định được thành phần nào giữ vai trò quyết định ở từng phôi[3].
Mối liên hệ giữa stress lưới nội chất và quá trình hình thành phôi nang còn được khảo sát trong mô hình động vật. Ở phôi chuột, Capatina và cộng sự (2022) ghi nhận việc tiếp xúc với nồng độ homocysteine cao làm tăng các dấu ấn UPR chủ yếu ở lớp tế bào lá nuôi, đi kèm giảm số tế bào và tăng chết tế bào theo chương trình. Can thiệp bằng tauroursodeoxycholic acid (TUDCA) trong mô hình này giúp làm giảm đáp ứng stress và những thay đổi bất lợi tại lớp tế bào lá nuôi. Tuy nhiên, đây là thí nghiệm trên phôi chuột trong điều kiện gây stress bằng homocysteine, không phải bằng chứng trực tiếp cho khả năng cải thiện phôi người ngừng phát triển[5].
Ở phôi bò tạo ra in vitro, Yoon và cộng sự (2014) ghi nhận điều kiện oxy cao làm tăng dấu hiệu stress oxy hóa và stress lưới nội chất, đồng thời giảm khả năng hình thành phôi nang[6]. Kết quả gợi ý hai hệ thống đáp ứng stress có thể tác động qua lại, nhưng không thể suy rộng mức độ ảnh hưởng từ phôi bò sang phôi người.
Sun và cộng sự (2026) sử dụng tunicamycin trên phôi lợn và ghi nhận tăng các dấu ấn ATF6, CHOP, GRP78, đi kèm giảm tỷ lệ hình thành phôi nang, đường kính phôi nang và số tế bào tăng sinh. Biểu hiện CDH1, TJP1 giảm, trong khi sự phân bố E-cadherin và một số protein biệt hóa thay đổi[7]. Các kết quả phù hợp với vai trò của liên kết tế bào trong tạo khoang phôi, nhưng vẫn chịu giới hạn của mô hình gây stress bằng thuốc.
Zhu và cộng sự (2026) ghi nhận OVOL1/2 giảm biểu hiện ở một số phôi 8 tế bào có hình thái tốt nhưng không hình thành phôi nang. Các thí nghiệm trên phôi chuột và mô hình phôi người 3 tiền nhân cho thấy giảm OVOL1/2 ảnh hưởng đến bộ khung actin và biệt hóa tế bào lá nuôi qua ARPC1B[8]. Nghiên cứu không xác định stress lưới nội chất gây ra thay đổi này, nhưng cho thấy nhiều con đường có thể cùng ảnh hưởng đến quá trình chuyển từ phôi dâu sang phôi nang.
- Kết luận
Stress lưới nội chất là cơ chế đáng quan tâm trong hiện tượng phôi ngừng phát triển, đặc biệt khi phôi chuyển từ giai đoạn phôi dâu sang phôi nang. Nghiên cứu trên phôi người ghi nhận tăng biểu hiện các protein liên quan đáp ứng stress, đi kèm giảm những protein cần thiết cho tính phân cực và liên kết giữa các phôi bào. Các mô hình động vật củng cố khả năng rối loạn xử lý protein ảnh hưởng đến quá trình nén phôi và hình thành khoang phôi. Tuy nhiên, hiện chưa xác định được stress lưới nội chất xuất hiện trước hay sau các bất thường khác ở từng phôi.
- Cimadomo D, Isernia M, Summers MC, Currie CE, Rienzi L, Ottolini CS. Preimplantation embryos that arrest in vitro: phenotypes, causes, and possible therapies. Fertil Steril. 2026;126(2):218-229. doi:10.1016/j.fertnstert.2026.06.003.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438. doi:10.1038/s41580-020-0250-z.
- Li Z, Leng L, Zhai J, et al. Two distinct causes contribute to the low efficiency of human pre-implantation development. Cell. 2026;189(15):4685-4705.e10. doi:10.1016/j.cell.2026.05.037.
- Surani MA. Glycoprotein synthesis and inhibition of glycosylation by tunicamycin in preimplantation mouse embryos: compaction and trophoblast adhesion. Cell. 1979;18(1):217-227. doi:10.1016/0092-8674(79)90370-2.
- Capatina N, Burton GJ, Yung HW. Elevated homocysteine activates unfolded protein responses and causes aberrant trophoblast differentiation and mouse blastocyst development. Physiol Rep. 2022;10(18). doi:10.14814/phy2.15467.
- Yoon SB, Choi SA, Sim BW, et al. Developmental competence of bovine early embryos depends on the coupled response between oxidative and endoplasmic reticulum stress. Biol Reprod. 2014;90(5):104. doi:10.1095/biolreprod.113.113480.
- Sun L, Wang JH, Yang YX, et al. Endoplasmic reticulum stress inducer tunicamycin reduces porcine embryo development by disturbing blastocoel formation and expansion. Animals (Basel). 2026;16(5):743. doi:10.3390/ani16050743.
- Zhu Y, Chen X, Deng X, et al. OVOL1/2 regulate trophectoderm differentiation during the morula-to-blastocyst transition. Commun Biol. 2026;9:1386. doi:10.1038/s42003-026-11168-x.
- ESHRE Working group on Time-lapse technology. Good practice recommendations for the use of time-lapse technology. Hum Reprod Open. 2020;2020(2). doi:10.1093/hropen/hoaa008.