Nội dung chính
Trong bối cảnh y học sinh sản và hỗ trợ sinh sản (Assisted Reproductive Technology - ART) hiện đại, những thay đổi về lối sống, môi trường và xu hướng trì hoãn sinh con đang làm gia tăng mức độ phức tạp của các ca vô sinh. Đáng chú ý là Hội chứng Buồng trứng - Chuyển hóa - Nội tiết (Polyendocrine Metabolic Ovarian Syndrome - PMOS), một thuật ngữ mới được cộng đồng y khoa quốc tế đăng trên tập chí The Lancet đề xuất nhằm thay thế cho Hội chứng buồng trứng đa nang (Polycystic Ovary Syndrome - PCOS). PMOS là một hội chứng đa nội tiết và chuyển hóa toàn thân, đặc trưng bởi kháng insulin, cường androgen và viêm mạn tính[1], qua đó có thể ảnh hưởng đến vi môi trường nang noãn và chất lượng noãn[2].
Tại các phòng labo thụ tinh trong ống nghiệm (In Vitro Fertilization - IVF), yếu tố vô sinh nam phức tạp, đặc biệt là tình trạng phân mảnh DNA tinh trùng (Sperm DNA Fragmentation - SDF) mức độ nặng ngày càng được quan tâm[3]. Mặc dù kỹ thuật tiêm tinh trùng vào bào tương noãn (Intracytoplasmic Sperm Injection - ICSI) đã vượt qua nhiều rào cản của quá trình thụ tinh tự nhiên, kỹ thuật này đồng thời đưa trực tiếp tinh trùng mang tổn thương DNA vào noãn[4]. Sau thụ tinh, việc xử lý và sửa chữa những tổn thương này phụ thuộc đáng kể vào bộ máy của noãn[4].
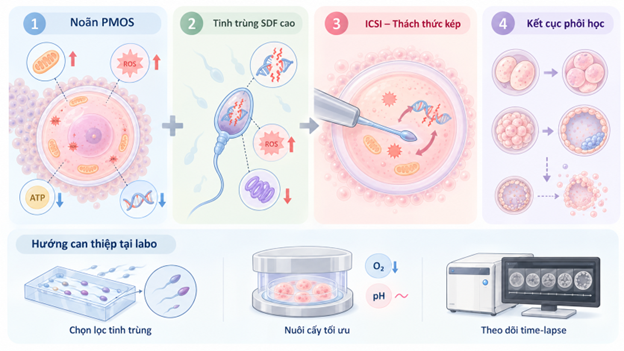
Sự kết hợp giữa noãn của bệnh nhân PMOS và tinh trùng mang tổn thương DNA nặng tạo ra một “thách thức kép”[5]. Tuy nhiên, hiện chưa có nghiên cứu trực tiếp chứng minh về cơ chế PMOS + SDF nặng. Bài viết này nhằm mục đích tổng hợp và phân tích các dữ liệu y văn hiện tại về cơ chế tương tác sinh học phân tử giữa noãn PMOS và tinh trùng tổn thương nặng, đánh giá các biểu hiện động học phát triển phôi và đề xuất các chiến lược can thiệp tại labo nhằm tối ưu hóa kết cục phôi học cho nhóm bệnh nhân đặc biệt này.
-
- Đặc điểm sinh học của tinh trùng mang tổn thương DNA nặng
Chất nhiễm sắc (chromatin) của tinh trùng có cấu trúc đóng gói đặc thù. Trong quá trình sinh tinh, khoảng 80–85% histone được thay thế bởi protamine, chủ yếu là PRM1 và PRM2[6]. Protamine giàu arginine liên kết chặt với DNA và hình thành liên kết disulfide, giúp nén DNA và bảo vệ bộ gen của người cha[6].
Ở những trường hợp tổn thương tinh trùng nặng, quá trình chuyển đổi histone-protamine này có thể không hoàn tất. Sự sai lệch tỷ lệ PRM1/PRM2 hoặc thiếu hụt protamine làm chromatin trở nên lỏng lẻo và mất đi khả năng bảo vệ tự nhiên[5]. Cấu trúc chromatin lỏng lẻo này chính là tiền đề khiến DNA tinh trùng cực kỳ nhạy cảm và dễ bị tấn công bởi các gốc oxy hóa tự do (Reactive Oxygen Species - ROS).
Stress oxy hóa (Oxidative Stress - OS) do viêm, bạch cầu trong tinh dịch hoặc rối loạn ty thể có thể làm tăng peroxy hóa lipid, ảnh hưởng đến độ di động và hình dạng tinh trùng, đồng thời tạo các sản phẩm oxy hóa như 4-hydroxynonenal và malondialdehyde, tiếp tục khuếch đại tổn thương[3]. ROS còn có thể tấn công trực tiếp các bazơ nitơ của DNA, tạo các tổn thương oxy hóa như 8-hydroxy-2'-deoxyguanosine (8-OHdG)[7]. Vì vậy, OS vừa làm suy giảm chất lượng tinh trùng vừa góp phần làm gia tăng tổn thương vật chất di truyền.
Tinh trùng trưởng thành gần như “im lặng” về mặt phiên mã và thiếu nhiều enzyme sửa chữa DNA. Sự thiếu hụt các thành phần của con đường sửa chữa cắt bỏ bazơ (Base Excision Repair - BER) như Apurinic/apyrimidinic endonuclease 1 (APE1) và XRCC1 khiến các tổn thương DNA sợi đơn (Single-Strand Breaks - SSBs) khó được sửa chữa và trong một số trường hợp có thể tiến triển thành đứt gãy DNA sợi kép (Double-Strand Breaks - DSBs)[4,8].
-
- Khả năng sửa chữa DNA của noãn trong PMOS
Ngay sau khi tinh trùng xâm nhập, noãn đóng vai trò quan trọng trong việc giải nén chromatin tinh trùng và sửa chữa một phần tổn thương DNA có nguồn gốc từ tinh trùng[4-8]. Do đó, kết cục của tổn thương DNA tinh trùng không chỉ phụ thuộc mức độ SDF mà còn phụ thuộc vào khả năng sửa chữa của noãn.
Ở noãn PMOS, rối loạn chức năng ty thể và stress oxy hóa là những cơ chế được quan tâm[2]. Ty thể là nguồn cung cấp adenosine triphosphate (ATP) cần thiết cho tái cấu trúc thoi vô sắc, giải nén nhân tinh trùng và các lần phân chia đầu tiên của hợp tử[9]. Noãn cũng chứa lượng DNA ty thể (mitochondrial DNA - mtDNA) rất lớn[9]. Nghiên cứu của Song L và cộng sự (2022) trên mô hình chuột PCOS cho thấy cường androgen có thể đi kèm với bất thường ty thể ở tế bào hạt buồng trứng[10]. Tổn thương ty thể vừa làm giảm ATP vừa làm tăng ROS nội sinh[11]. Vì vậy, về mặt cơ chế, noãn PMOS có thể dễ bị quá tải hơn khi phải xử lý thêm tổn thương DNA từ tinh trùng.
Trong những giai đoạn đầu sau thụ tinh, phôi phụ thuộc nhiều vào các yếu tố có nguồn gốc từ noãn, bao gồm các protein tham gia đáp ứng và sửa chữa tổn thương DNA[4,6]. Các nghiên cứu về đáp ứng tổn thương DNA ở noãn cho thấy con đường sửa chữa tái tổ hợp tương đồng (Homologous Recombination - HR) và nối đầu không tương đồng (Non-Homologous End Joining - NHEJ) đều tham gia sửa chữa DSB trong quá trình trưởng thành noãn, nhưng vai trò của hai con đường này khác nhau và phụ thuộc giai đoạn tế bào[12,13].
HR là cơ chế sửa chữa DSB có độ chính xác cao nhưng phụ thuộc vào tính toàn vẹn của nhiễm sắc thể và các thành phần của bộ máy sửa chữa. Nghiên cứu của Leem và cộng sự (2025) cho thấy những thay đổi về cohesin có thể ảnh hưởng đến khả năng sửa chữa DNA ở noãn[12]. NHEJ hoạt động nhanh chóng nhưng có thể tạo sai sót trong quá trình nối các đầu DNA bị đứt[13]. Do đó, khi năng lực sửa chữa và nguồn năng lượng của noãn bị hạn chế, khả năng xử lý thêm tổn thương DNA từ tinh trùng có thể giảm. Mức độ ảnh hưởng riêng của PMOS lên từng con đường sửa chữa vẫn cần thêm bằng chứng trực tiếp ở noãn người.
Khi một tinh trùng mang SDF cao được tiêm trực tiếp vào bào tương noãn PMOS thông qua kỹ thuật ICSI, các hệ thống của noãn phải đồng thời đảm nhiệm quá trình giải nén chromatin, hình thành tiền nhân và xử lý những tổn thương DNA đã có từ trước.
-
- Sự sụp đổ của ngưỡng sửa chữa DNA ở hợp tử
Sau khi xâm nhập, màng nhân tinh trùng vỡ ra và chromatin được tháo xoắn để hình thành tiền nhân đực (male pronucleus), đồng thời các tổn thương DNA được nhận diện và sửa chữa. Noãn có khả năng sửa chữa tốt đối với SSB nhưng chỉ xử lý được một lượng DSB giới hạn[5]. Do đó, mức độ SDF của tinh trùng và năng lực sửa chữa của noãn là hai yếu tố quyết định khả năng duy trì tính toàn vẹn bộ gen của hợp tử[5,6].
Khi lượng DSB vượt quá ngưỡng dung nạp, các hệ thống cảm biến tổn thương như phức hợp Mre11-Rad50-Nbs1 (MRN), kinase ataxia-telangiectasia mutated (ATM) và kinase ATM and Rad3-related (ATR) có thể được hoạt hóa, truyền tín hiệu đến các trạm kiểm soát chu kỳ tế bào (cell cycle checkpoints)[13]. Trong bối cảnh năng lực sửa chữa và nguồn năng lượng của noãn bị hạn chế, các DSB có thể tồn tại khi hợp tử bước vào sao chép DNA và phân chia. Nếu sửa chữa thất bại, các tín hiệu đáp ứng tổn thương DNA có thể góp phần thúc đẩy quá trình chết tế bào theo chương trình (apoptosis) của hợp tử[13]. Đây là một cơ chế có thể giải thích vì sao tổn thương DNA tinh trùng mức độ nặng thường biểu hiện rõ hơn ở các giai đoạn phát triển phôi sau thụ tinh.
-
- Quá tải hệ thống chống oxy hóa và sự cạn kiệt Glutathione
Glutathione (GSH) của noãn tham gia quá trình khử các liên kết disulfide của protamine, hỗ trợ giải nén chromatin tinh trùng sau thụ tinh[5,7]. Đồng thời, GSH là một thành phần quan trọng của hệ thống chống oxy hóa tế bào.
Stress oxy hóa là một cơ chế quan trọng trong tổn thương tinh trùng và cũng là yếu tố cần kiểm soát trong ART[3,8,14]. Tinh trùng có SDF cao có thể mang theo lượng ROS và sản phẩm peroxy hóa lipid lớn hơn. Noãn phải huy động hệ thống chống oxy hóa gồm GSH, Superoxide Dismutase (SOD) và Catalase để trung hòa các gốc tự do[14].
Ở bệnh nhân PMOS, rối loạn chuyển hóa và cường androgen có thể đi kèm với stress oxy hóa và rối loạn chức năng ty thể[10,11]. Nếu noãn đồng thời phải xử lý lượng ROS và tổn thương DNA lớn từ tinh trùng, nhu cầu sử dụng hệ thống chống oxy hóa và nguồn năng lượng có thể tăng thêm. Về mặt cơ chế, sự suy giảm GSH có thể ảnh hưởng đến cả quá trình giải nén protamine và khả năng trung hòa ROS[5,7,14]. Tuy nhiên, chuỗi diễn biến từ suy giảm GSH đến thất bại sửa chữa DNA và apoptosis trong chính nhóm PMOS kết hợp SDF nặng vẫn chưa được chứng minh trực tiếp.
-
- Hiện tượng phôi ngừng phát triển và thất bại kích hoạt bộ gen phôi
Ảnh hưởng của tổn thương DNA tinh trùng có thể không biểu hiện ngay ở giai đoạn hợp tử hoặc phân chia sớm. Trong Ngày 1 và Ngày 2, phôi phụ thuộc chủ yếu vào mRNA và protein dự trữ của noãn[4]. Vì vậy, một số phôi mang DNA tinh trùng lỗi vẫn có thể hoàn tất các lần phân chia đầu tiên. Tuy nhiên khi bước vào Ngày 3, phôi bắt đầu kích hoạt bộ gen của chính mình (Embryonic Genome Activation - EGA), và lúc này những bất ổn về bộ gen có thể bộc lộ rõ hơn[15].
Quá trình EGA cần có sự tham gia của cả bộ gen từ cha và mẹ để tổng hợp các mRNA mới. Nghiên cứu của Tesarik và cộng sự (2004) cho thấy ảnh hưởng của SDF có thể biểu hiện rõ hơn ở giai đoạn phát triển phôi muộn thay vì ngay sau thụ tinh[15]. Kết quả này ủng hộ khái niệm “late paternal effect”, cho thấy tác động của tổn thương DNA từ tinh trùng có thể trở nên rõ rệt khi phôi ngày càng phụ thuộc vào bộ gen của chính mình[15]. Tuy nhiên, nghiên cứu này không trực tiếp đánh giá nhóm bệnh nhân PMOS.
-
- Động học tế bào bất thường qua hệ thống Time-lapse
Hệ thống Time-lapse cho phép theo dõi liên tục thời điểm xảy ra từng lần phân chia (cleavage) và ghi nhận những bất thường mà đánh giá hình thái học tại một thời điểm có thể bỏ sót. Trong bối cảnh SDF cao, các dữ liệu morphokinetic có thể cung cấp thêm thông tin về diễn tiến phát triển phôi[16].
Thứ nhất, phôi có thể xuất hiện phân chia trực tiếp (Direct Cleavage - DC). Thay vì tuân theo quy luật phân chia nhị phân sinh lý, một số phôi có thể chuyển từ 1 thành 3 tế bào trong thời gian rất ngắn. Nghiên cứu của Setti và cộng sự (2021) cho thấy tỷ lệ DC/phân chia ngược (Reverse Cleavage – RC) cao hơn ở nhóm có SDF ≥30%[16]. Đây là một bất thường động học có thể liên quan đến rối loạn phân ly nhiễm sắc thể, nhưng cơ chế riêng của sự kết hợp PMOS và SDF cao vẫn chưa được chứng minh trực tiếp.
Thứ hai, thời lượng của các chu kỳ phân chia tế bào (cell cycles) có thể bị kéo dài hoặc mất tính đồng bộ. Các thông số động học như t2, t3, t5 (thời điểm đạt 2, 3, 5 tế bào), cũng như cc2 và cc3 (độ dài chu kỳ tế bào thứ 2 và thứ 3) giúp mô tả chi tiết diễn tiến của chu kỳ tế bào. Nghiên cứu của Setti và cộng sự (2021) cho thấy phôi có nguồn tinh trùng SDF ≥30% có xu hướng phân chia và bắt đầu tạo phôi nang chậm hơn[16]. Những thay đổi này nên được xem là các dấu hiệu động học liên quan với SDF, thay vì bằng chứng trực tiếp cho cơ chế PMOS + SDF.
Thứ ba, đa nhân ở giai đoạn 2 tế bào (multinucleation at 2-cell stage - MN2) có thể phản ánh bất thường trong phân ly nhiễm sắc thể và phân chia tế bào. Cũng trong nghiên cứu của Setti và cộng sự (2021) ghi nhận tỷ lệ MN2 cao hơn ở nhóm có SDF ≥30%[16]. Các vi nhân (micronuclei) cũng có thể phản ánh những bất thường về vật chất di truyền trong phôi, nhưng mối liên hệ cụ thể giữa MN2, SDF và PMOS vẫn cần được nghiên cứu thêm[17].
-
- Chất lượng phôi nang và các nhịp co thắt
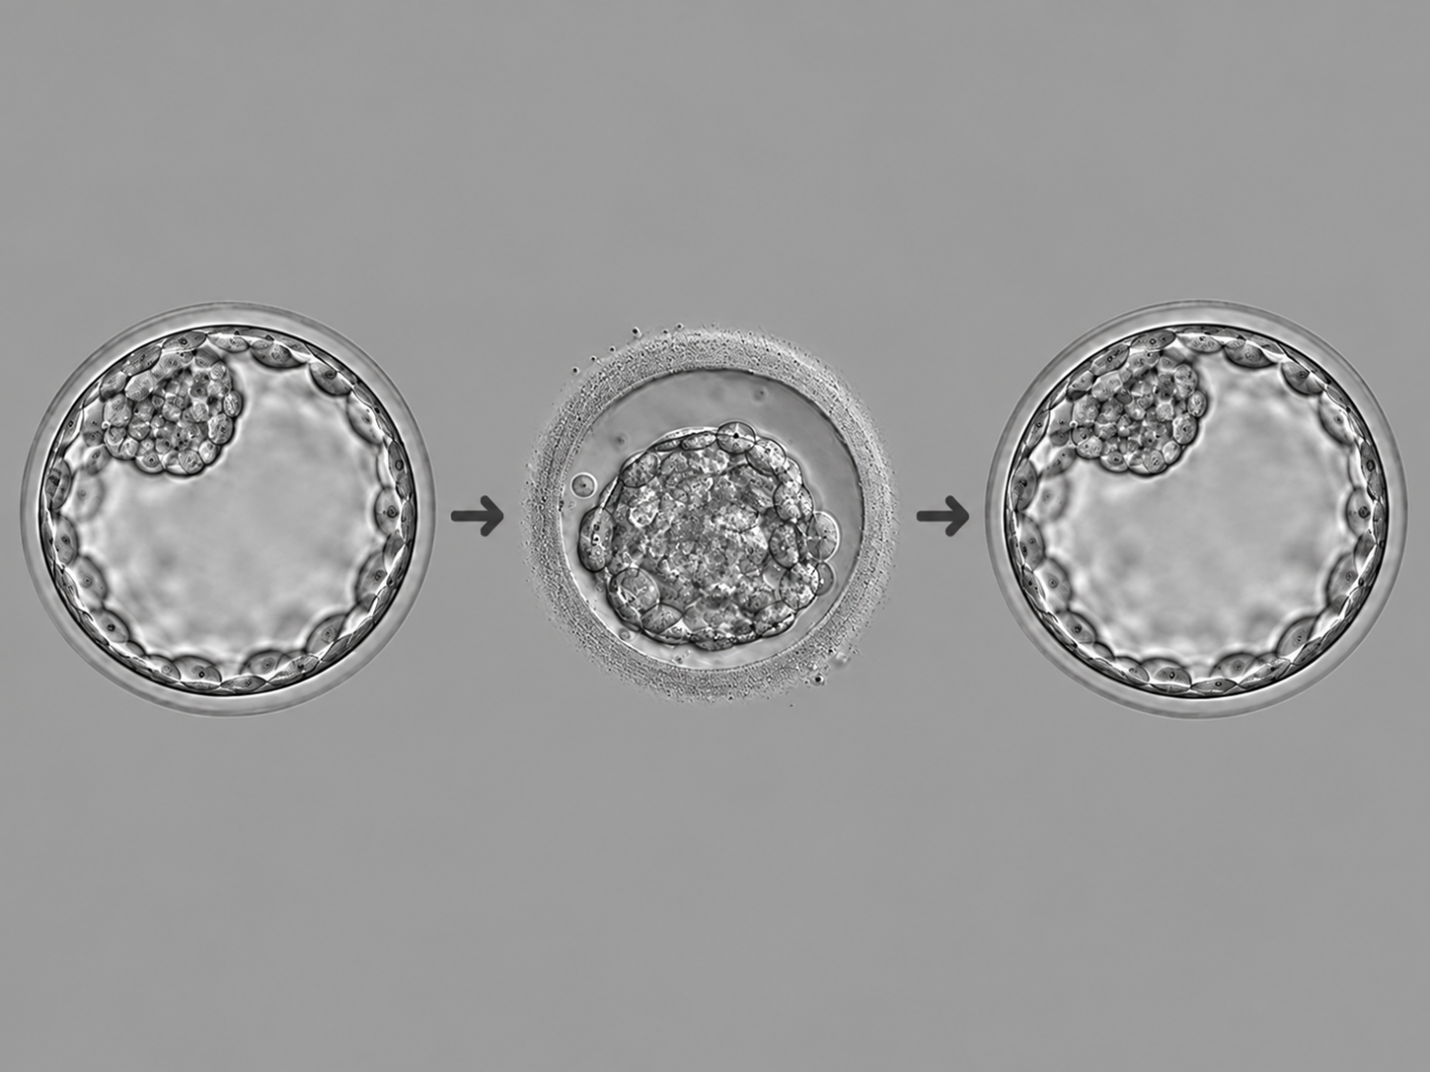
Sau các bất thường phân chia sớm, tỷ lệ hình thành phôi nang Ngày 5/Ngày 6 có thể giảm. Ở những phôi phát triển đến phôi nang, chất lượng và khả năng làm tổ vẫn có thể bị ảnh hưởng, trong đó đáng chú ý là hiện tượng phôi co không sinh lý (blastocyst collapse). Đây là một dấu hiệu động học chỉ có thể đánh giá đầy đủ khi theo dõi liên tục bằng Time-lapse.
Quá trình hình thành khoang phôi nang (blastocoel) là một cơ chế thủy động học phức tạp. Bơm Na+/K+-ATPase nằm ở màng đáy của lớp tế bào lá nuôi (trophectoderm - TE) chủ động bơm ion Na+ vào khoang, kéo theo sự di chuyển của nước qua cơ chế thẩm thấu[18]. Để giữ được lượng dịch này và tạo áp suất thủy tĩnh giúp phôi nang nở rộng, các tế bào TE liên kết với nhau thông qua cấu trúc liên kết chặt (tight junctions). Cấu trúc này được cấu thành từ các mạng lưới protein chuyên biệt như ZO-1, Occludin và Claudin[18].
Ở phôi phát triển đến giai đoạn phôi nang, hiện tượng collapse có thể được đánh giá bằng Time-lapse và được xem là một chỉ dấu động học liên quan đến tiềm năng làm tổ[18]. Tuy nhiên, hiện chưa có bằng chứng trực tiếp cho thấy PMOS kết hợp với SDF nặng gây giảm ZO-1 hoặc trực tiếp dẫn đến collapse. Vì vậy, trong bối cảnh bài viết này, blastocyst collapse nên được xem là một dấu hiệu phôi học bổ sung để đánh giá chất lượng và tiềm năng làm tổ, thay vì đánh giá đây là một hậu quả của “thách thức kép”.
Cần phân biệt collapse với các nhịp co thắt sinh lý bình thường. Trong nghiên cứu đa trung tâm của Sciorio và cộng sự (2020), phôi nang được xác định là collapse khi thể tích giảm ít nhất 50%; nhóm phôi nang collapse có tỷ lệ thai diễn tiến thấp hơn nhóm không collapse[18]. Vì vậy, collapse có thể là một chỉ dấu bổ sung trong đánh giá phôi, nhưng chưa được chứng minh là có liên quan đến tỷ lệ phôi lệch bội, apoptosis hay nguyên nhân tổn thương DNA.
-
- Lựa chọn tinh trùng: Loại bỏ tối đa tinh trùng đứt gãy DNA trước ICSI
Từ những cơ chế trên, một mục tiêu quan trọng của labo là giảm lượng tổn thương DNA và ROS được đưa vào noãn khi ICSI. Các phương pháp xử lý tinh trùng như ly tâm đẳng tỷ trọng (Density Gradient Centrifugation - DGC) và bơi lên (Swim-up) vẫn được sử dụng rộng rãi, nhưng có thể chưa tối ưu ở một số mẫu SDF cao[19,20]. Do đó, cần cân nhắc khả năng hạn chế thêm stress oxy hóa và bảo toàn quần thể tinh trùng có chất lượng tốt.
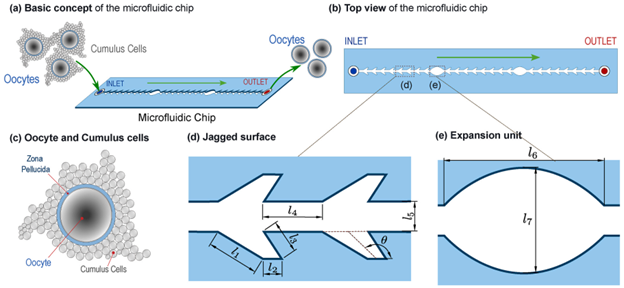
Công nghệ chọn lọc tinh trùng vi dòng chảy (Microfluidics), điển hình như ZyMōt, là một hướng tiếp cận đang được quan tâm nhằm lựa chọn quần thể tinh trùng có độ di động tốt và giảm một phần tổn thương DNA. Phương pháp này loại bỏ bước ly tâm trong quá trình chọn lọc và có thể cải thiện một số chỉ số chất lượng tinh trùng so với các phương pháp xử lý truyền thống[19,20]. Tuy nhiên, bằng chứng về lợi ích trên kết cục phôi và lâm sàng vẫn chưa đủ để khẳng định hiệu quả vượt trội trong mọi nhóm bệnh nhân.
Các nghiên cứu cho thấy vi dòng chảy có thể làm giảm mức độ SDF ở một số mẫu tinh dịch và thu hồi quần thể tinh trùng có chất lượng tốt hơn[20]. Trong nghiên cứu của Quinn và cộng sự (2018), vi dòng chảy làm giảm tổn thương DNA so với DGC kết hợp Swim-up trong các mẫu tinh dịch được chia đôi để so sánh[20]. Kết quả này ủng hộ khả năng giảm gánh nặng DNA tổn thương đưa vào ICSI, nhưng không đủ để kết luận rằng phương pháp này trực tiếp làm tăng tỷ lệ phôi nang hay trẻ sinh sống. Hiệu quả lâm sàng cần được đánh giá thêm theo từng quần thể bệnh nhân và quy trình labo.
Ở các mẫu tinh trùng rất yếu, bất động hoặc thu được từ thủ thuật vi phẫu tinh hoàn, cần tối ưu lựa chọn tinh trùng sống, kiểm soát nhiệt độ và hạn chế các yếu tố gây thêm stress oxy hóa trong quá trình ICSI.
-
- Tối ưu hóa môi trường nuôi cấy
Song song với lựa chọn tinh trùng, cần tối ưu hóa môi trường nuôi cấy để hạn chế stress oxy hóa. Các điều kiện nuôi cấy phôi, bao gồm nồng độ oxy và pH, cần được kiểm soát ổn định[14]. Nuôi cấy phôi trong điều kiện oxy thấp, thường khoảng 5% O2, có thể giúp hạn chế ROS ngoại lai. Một số hướng nghiên cứu cũng tập trung vào Melatonin, N-acetyl cysteine, Vitamin C và L-carnitine nhằm hỗ trợ mạng lưới GSH nội sinh[14]. Tuy nhiên, việc bổ sung các chất này cần được cân nhắc về liều lượng, thời điểm và tính an toàn đối với phôi.
Việc hạn chế stress oxy hóa và bảo vệ chức năng ty thể có thể giúp duy trì ATP, từ đó hỗ trợ các quá trình sửa chữa DNA và phân chia phôi. Về mặt cơ chế, duy trì nguồn năng lượng của noãn có thể giúp giảm tác động cộng hưởng giữa ROS, tổn thương ty thể và suy giảm sửa chữa DNA. Tuy nhiên, hiệu quả và tính an toàn của các chiến lược bổ sung chất chống oxy hóa cần được đánh giá thêm trước khi áp dụng thường quy.
Từ những dữ liệu y văn hiện có, sự kết hợp giữa noãn PMOS và tinh trùng mang tổn thương DNA nặng có thể làm gia tăng gánh nặng lên hệ thống sửa chữa của noãn và ảnh hưởng đến khả năng phát triển phôi. Những ảnh hưởng này có thể biểu hiện qua sự chậm phát triển và các bất thường động học. Do đó, tiếp cận tại labo cần được cá thể hóa, tập trung vào lựa chọn tinh trùng, kiểm soát môi trường nuôi cấy và khai thác dữ liệu Time-lapse như một nguồn thông tin bổ sung. Tuy nhiên, vẫn cần thêm các nghiên cứu lâm sàng có chất lượng và quy mô phù hợp để xác định hiệu quả của từng chiến lược.
[1] Teede HJ, Bahri Khomami M, Morman R, Laven JSE, Joham AE, Costello MF, et al. Polyendocrine metabolic ovarian syndrome, the new name for polycystic ovary syndrome: a multistep global consensus process. Lancet. 2026;407(10545):2329-2339. doi:10.1016/S0140-6736(26)00717-8.
[2] Zhang J, Mai Q, Zhou C. Mitochondrial DNA copy number variation and gene mutations mediate polycystic ovary syndrome: research progress. Am J Transl Res. 2024;16(11):6303-6313. doi:10.62347/KEWS9270.
[3] Aitken RJ, Smith TB, Jobling MS, Baker MA, De Iuliis GN. Oxidative stress and male reproductive health. Asian J Androl. 2014;16(1):31-38. doi:10.4103/1008-682X.122203.
[4] Li N, Wang H, Zou S, Yu X, Li J. Perspective in the mechanisms for repairing sperm DNA damage. Reprod Sci. 2025;32(1):41-51. doi:10.1007/s43032-024-01714-5.
[5] González-Marín C, Gosálvez J, Roy R. Types, causes, detection and repair of DNA fragmentation in animal and human sperm cells. Int J Mol Sci. 2012;13(11):14026-14052. doi:10.3390/ijms131114026.
[6] Oliva R. Protamines and male infertility. Hum Reprod Update. 2006;12(4):417-435. doi:10.1093/humupd/dml009.
[7] Wang Y, Fu X, Li H. Mechanisms of oxidative stress-induced sperm dysfunction. Front Endocrinol (Lausanne). 2025;16:1520835. doi:10.3389/fendo.2025.1520835.
[8] Leem J, Bai GY, Oh JS. The capacity to repair sperm DNA damage in zygotes is enhanced by inhibiting WIP1 activity. Front Cell Dev Biol. 2022;10:841327. doi:10.3389/fcell.2022.841327.
[9] Van Blerkom J. Mitochondrial function in the human oocyte and embryo and their role in developmental competence. Mitochondrion. 2011;11(5):797-813. doi:10.1016/j.mito.2010.09.012.
[10] Song L, Yu J, Zhang D, Li X, Chen L, Cai Z, et al. Androgen excess induced mitochondrial abnormality in ovarian granulosa cells in a rat model of polycystic ovary syndrome. Front Endocrinol (Lausanne). 2022;13:789008. doi:10.3389/fendo.2022.789008.
[11] Tharayil SP, Shukla P. Connecting the dots: mitochondrial dysfunction, PCOS, and insulin resistance-insights and therapeutic advances. Int J Mol Sci. 2025;26(13):6233. doi:10.3390/ijms26136233.
[12] Leem J, Oh JS. Preserving genomic integrity during female meiosis: detecting, repairing, and responding to maternal DNA damage. In: Mogessie B, editor. Cellular Architecture and Dynamics in Female Meiosis. Cham: Springer; 2025. p.89-112. doi:10.1007/978-3-031-97173-0_5.
[13] Leem J, Lee C, Choi DY, Oh JS. Distinct characteristics of the DNA damage response in mammalian oocytes. Exp Mol Med. 2024;56(2):319-328. doi:10.1038/s12276-024-01178-2.
[14] Mauchart P, Vass RA, Nagy B, Sulyok E, Bódis J, Kovács K. Oxidative stress in assisted reproductive techniques, with a focus on an underestimated risk factor. Curr Issues Mol Biol. 2023;45(2):1272-1286. doi:10.3390/cimb45020083.
[15] Tesarik J, Greco E, Mendoza C. Late, but not early, paternal effect on human embryo development is related to sperm DNA fragmentation. Hum Reprod. 2004;19(3):611-615. doi:10.1093/humrep/deh127.
[16] Setti AS, Braga DPAF, Guilherme P, Provenza R, Iaconelli A Jr, Borges E Jr. Morphokinetic parameter comparison between embryos from couples with high or low sperm DNA fragmentation index. F S Sci. 2021;2(4):345-354. doi:10.1016/j.xfss.2021.10.001.
[17] Yao Y, Wang M, Liu M, Zhang Y, Mi Z, Mao J, et al. Micronuclei in 2-cell embryos show higher blastocyst formation rates on human embryonic development. Eur J Obstet Gynecol Reprod Biol. 2024;302:26-32. doi:10.1016/j.ejogrb.2024.08.039.
[18] Sciorio R, Herrer Saura R, Thong KJ, Esbert Algam M, Pickering SJ, Meseguer M. Blastocyst collapse as an embryo marker of low implantation potential: a time-lapse multicentre study. Zygote. 2020;28(2):139-147. doi:10.1017/S0967199419000819.
[19] Tachibana R, Takeuchi H, Yotsutani M, Nishioka M, Takayama E, Kondo E. Comparative evaluation of two microfluidic sperm sorting devices: laboratory assessment of sperm quality and retrospective analysis of embryological outcomes following intracytoplasmic sperm injection. Reprod Med Biol. 2026;25(1):e70010. doi:10.1002/rmb2.70010.
[20] Quinn MM, Jalalian L, Ribeiro S, Ona K, Demirci U, Cedars MI, et al. Microfluidic sorting selects sperm for clinical use with reduced DNA damage compared to density gradient centrifugation with swim-up in split semen samples. Hum Reprod. 2018;33(8):1388-1393. doi:10.1093/humrep/dey239.