Nội dung chính
- Giới thiệu
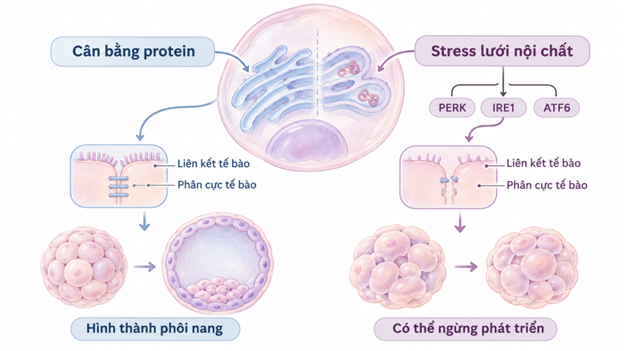
Trong thụ tinh trong ống nghiệm (IVF), hiện tượng phôi ngừng phát triển sớm là rào cản sinh học lớn ảnh hưởng trực tiếp đến tỉ lệ tạo phôi nang và kết quả lâm sàng. Thống kê cho thấy khoảng 30% đến 50% hợp tử thụ tinh phát triển thành công đến phôi nang in vitro, trong khi 40% đến 60% phôi còn lại bị thoái hóa hoặc ngừng phân chia ở các giai đoạn phôi phân chia (từ 2 đến 8 tế bào hoặc phôi dâu) [1]. Về mặt lâm sàng, phôi được xác định là ngừng phát triển khi không ghi nhận bất kỳ hoạt động phân bào nào trong ít nhất 24 giờ [2]. Các nghiên cứu chỉ ra việc phôi ngừng phát triển đến từ nhiều nguyên nhân phức tạp, kết hợp giữa bất thường di truyền của phôi và các yếu tố sinh lý từ bố mẹ.
- Các nguyên nhân phân tử và tế bào dẫn đến phôi ngừng phát triển
1. Bất thường nhiễm sắc thể
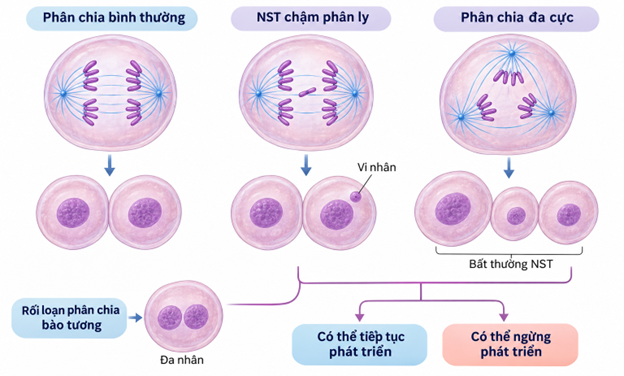
Bất thường nhiễm sắc thể, đặc biệt là hiện tượng lệch bội, được xem là một trong những nguyên nhân chủ yếu dẫn đến bất thường phân bào và ngừng phát triển phôi ở giai đoạn tiền làm tổ. Các nghiên cứu ghi nhận tỉ lệ lệch bội ở nhóm phôi ngừng phát triển có thể lên đến 94%, cao hơn đáng kể so với mức 69% ở nhóm phôi phát triển thành công đến giai đoạn phôi nang [3]. Khác với lệch bội có nguồn gốc từ giảm phân, thường liên quan đến sai sót phân ly nhiễm sắc thể trong noãn và có xu hướng gia tăng theo tuổi mẹ, lệch bội phát sinh trong quá trình nguyên phân sau thụ tinh được xem là một cơ chế quan trọng liên quan đến hiện tượng ngừng phát triển phôi sớm. Phân tích dữ liệu động học phát triển phôi cho thấy các bất thường trong những chu kỳ phân bào đầu tiên, đặc biệt là hiện tượng phân chia trực tiếp từ một tế bào thành ba tế bào, có thể dẫn đến sự hình thành các bất thường nhiễm sắc thể phức tạp, ảnh hưởng đồng thời đến nhiều nhiễm sắc thể và làm suy giảm tính ổn định của bộ gen [3]. Về mặt sinh học, tình trạng lệch bội phức tạp gây mất cân bằng gen, làm rối loạn biểu hiện gen và cân bằng nội môi tế bào, đồng thời thúc đẩy sự tích tụ các protein bất thường hoặc không được gấp cuộn đúng cấu trúc, dẫn đến stress độc tính protein (proteotoxic stress) và gia tăng gánh nặng chuyển hóa năng lượng [2]. Bên cạnh đó, những rối loạn trong quá trình sao chép DNA có thể gây stress sao chép (replication stress), làm tăng nguy cơ tổn thương DNA, đặc biệt là đứt gãy DNA sợi kép (double-strand breaks - DSBs), từ đó ảnh hưởng đến tính toàn vẹn của bộ gen của phôi bào. Tuy nhiên, lệch bội không phải là yếu tố duy nhất quyết định khả năng phát triển của phôi, bởi khoảng 16% phôi có bộ nhiễm sắc thể lưỡng bội bình thường vẫn có thể ngừng phát triển [3]. Đáng chú ý, một số phân tích di truyền trên phôi ngày 5 ghi nhận tỉ lệ phôi lưỡng bội ở nhóm ngừng phát triển và nhóm hình thành phôi nang tương đồng, lần lượt là 66% và 58% [4]. Những kết quả này cho thấy sự hiện diện của bộ nhiễm sắc thể bình thường chưa đủ để bảo đảm tiềm năng phát triển của phôi; thay vào đó, hiện tượng ngừng phát triển phôi có thể bắt nguồn từ sự phối hợp của nhiều cơ chế bệnh sinh, bao gồm các bất thường phân tử, rối loạn điều hòa biểu hiện gen, khiếm khuyết chức năng tế bào và những tác động bất lợi từ môi trường nuôi cấy in vitro. Do đó, đánh giá tiềm năng phát triển của phôi cần xem xét đồng thời tình trạng bội thể, tính toàn vẹn của bộ gen và chức năng của phôi bào.
2. Thất bại trong chuyển tiếp từ kiểm soát của mẹ sang hợp tử (Maternal-to-Zygotic Transition - MZT) và kích hoạt bộ gen phôi (Embryonic Genome Activation - EGA)
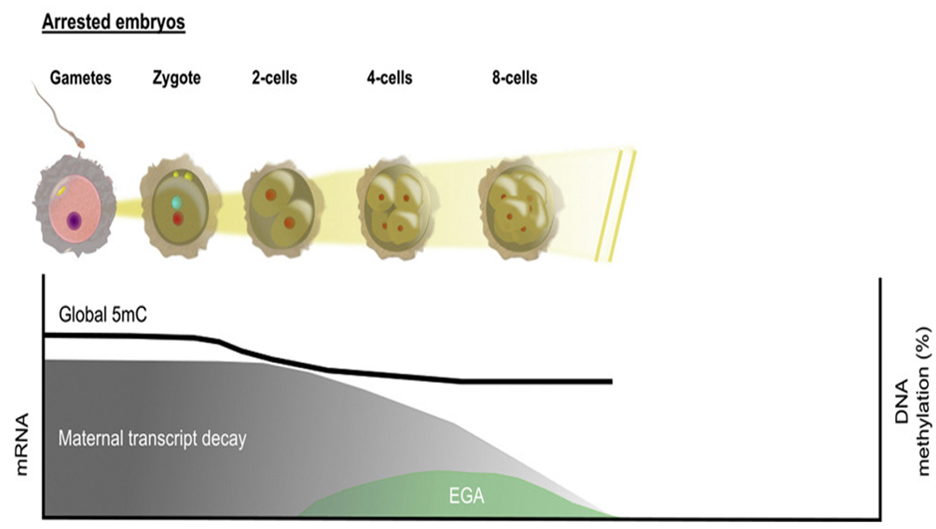
Quá trình chuyển tiếp từ kiểm soát của mẹ sang hợp tử (Maternal-to-Zygotic Transition - MZT) diễn ra từ khi thụ tinh đến giai đoạn 4 - 8 tế bào (ngày 2-3 sau thụ tinh). MZT gồm hai sự kiện song song: loại bỏ bản sao RNA từ noãn mẹ (maternal RNA clearance), đồng thời khởi động kích hoạt bộ gen phôi (Embryonic Genome Activation - EGA), đánh dấu sự chuyển giao quyền kiểm soát hoạt động phiên mã từ bộ gen mẹ sang bộ gen hợp tử. Ở phôi bình thường, EGA diễn ra theo 2 giai đoạn, bao gồm kích hoạt phiên mã sớm (minor EGA) diễn ra ở mốc 2-4 tế bào nhờ các yếu tố phiên mã họ DUX (DUX4, DUXA) và ZSCAN4, sau đó là kích hoạt phiên mã chính (major EGA) ở giai đoạn 8 tế bào [5]. Ở phôi ngừng phát triển, các gen EGA cốt lõi như DUX4, DUXA, ZSCAN4 hoặc LEUTX không thể gia tăng biểu hiện dẫn đến thất bại trong EGA. Giải trình tự RNA đơn bào (single-cell RNA sequencing - scRNA-seq) chỉ ra khoảng 40% phôi ngừng phát triển thất bại hoàn toàn trong kích hoạt bộ gen, khiến phôi bào bị kẹt ở trạng thái phiên mã tương tự noãn [5]. Song song với đó, sự suy giảm hoạt động của các cơ chế phân hủy RNA mẹ, liên quan đến các yếu tố điều hòa như BTG4, PAN2 và CNOT6L, có thể dẫn đến hiện tượng tồn dư bất thường các bản sao phiên mã có nguồn gốc từ mẹ (maternal RNA persistence) [1]. Sự tích tụ RNA mẹ không được phân hủy đúng thời điểm làm cản trở quá trình tái cấu trúc hệ phiên mã, đồng thời gây trở ngại cho việc thiết lập chương trình biểu hiện gen phôi. Hệ quả là quá trình chuyển giao quyền kiểm soát từ bộ gen mẹ sang bộ gen hợp tử bị gián đoạn, làm hạn chế khả năng tổng hợp các protein cần thiết cho những giai đoạn phát triển tiếp theo. Những phôi có khiếm khuyết trong MZT/EGA thường được xếp vào nhóm ngừng phát triển loại I (Type I arrest), đặc trưng bởi hiện tượng ngừng phân bào ở giai đoạn 2-4 tế bào.
3. Rối loạn di truyền biểu sinh
Sự phát triển của phôi đòi hỏi tái lập trình di truyền biểu sinh trên quy mô toàn hệ gen (global epigenetic reprogramming), gồm quá trình khử methyl DNA trên diện rộng (global DNA demethylation) ở hai bộ gen bố mẹ nhằm khôi phục tính toàn năng và hoạt hóa các chương trình phiên mã cần thiết cho sự phát triển phôi. Tuy nhiên, ở những phôi ngừng phát triển sớm, quá trình tái lập trình biểu sinh có thể bị rối loạn.
- Duy trì mức độ methyl hóa cao bất thường (global hypermethylation): Phân tích scBS-seq (single-cell bisulfite sequencing) chỉ ra hơn 50% phôi ngừng phát triển sớm mang trạng thái methyl hóa cao bất thường [5]. Sự thất bại xóa bỏ dấu ấn methyl hóa cản trở nhân tố phiên mã tiếp cận vùng khởi động của gen (promoter regions), từ đó kìm hãm sự kích hoạt bộ gen phôi.
- Mất cân bằng trong hoạt động của yếu tố điều hòa biểu sinh: Sự suy giảm yếu tố điều hòa kìm hãm (như HDAC1, DNMT1, UHRF1, PRMT5) làm tăng hoạt động của các yếu tố di tố di truyền di động (transposable elements) như trình tự LINE-1 [5]. Sự hoạt hóa bất thường của các trình tự này không chỉ làm gia tăng nguy cơ mất ổn định hệ gen mà còn có thể gây biến đổi cấu trúc nhiễm sắc chất và ảnh hưởng đến sự điều hòa biểu hiện của các gen thiết yếu trong quá trình phát triển phôi.
- Bất thường trong thiết lập và duy trì dấu ấn di truyền: Giảm methyl hóa (hypomethylation) bất thường ở vùng H19DMR alen bố, hoặc tăng methyl hóa (hypermethylation) ở promoter gen Oct4, khiến phôi không thể thiết lập chương trình biệt hóa [2].
4. Rối loạn chuyển hóa tế bào
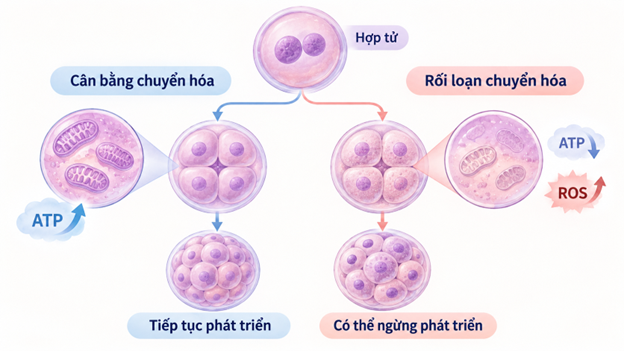
Nhiều phôi dù vượt qua MZT vẫn bị ngừng phát triển ở giai đoạn 8 tế bào hoặc phôi dâu. Các dữ liệu phân tích biểu hiện gen cho thấy nhóm phôi này ngừng phát triển do rơi vào trạng thái tương tự ngủ đông (quiescent-like state) [1]. Trạng thái này đặc trưng bởi sự suy giảm biểu hiện của gen mã hóa histone, tiểu đơn vị ribosome và yếu tố kiểm soát chu kỳ tế bào (CCNA2, CENPA). Đồng thời, các con đường ức chế tăng sinh như p53, FOXO1 và SASP bị kích hoạt, trong khi gen thúc đẩy tăng trưởng MYC (myelocytomatosis oncogene) bị ngừng hoạt động [1]. Bên cạnh sự thay đổi chương trình phiên mã, rối loạn chuyển hóa năng lượng cũng đóng vai trò quan trọng trong cơ chế ngừng phát triển phôi. Ở các giai đoạn phát triển sớm, phôi phụ thuộc vào quá trình oxy hóa phosphoryl hóa để đáp ứng nhu cầu năng lượng, nhưng khi đến giai đoạn phôi nang cần tăng cường đường phân và oxy hóa axit béo nhằm đáp ứng nhu cầu năng lượng và các tiền chất sinh tổng hợp phục vụ tăng sinh, biệt hóa tế bào [1]. Ở các phôi ngừng phát triển thuộc nhóm II và III không thể kích hoạt đường phân, bị mắc kẹt ở trạng thái ưu tiên oxy hóa phosphoryl hóa bất thường và không đáp ứng được nhu cầu chuyển hóa đặc thù của các giai đoạn phát triển tiếp theo. Một số nghiên cứu thực nghiệm bổ sung chất kích hoạt sirtuin (như Resveratrol hoặc Nicotinamide Riboside - NR) có thể tái hoạt động SIRT1, khôi phục đường phân và giúp phôi thoát khỏi trạng thái ngủ đông để tiếp tục phân chia [1]. Tuy nhiên, hiệu quả của các hợp chất này đối với khả năng giải phóng phôi khỏi trạng thái ngừng phát triển vẫn cần được kiểm chứng thêm trong các nghiên cứu thực nghiệm và lâm sàng. Ngoài ra, những bất thường về chức năng ti thể cũng có thể làm trầm trọng thêm tình trạng rối loạn chuyển hóa năng lượng. Các bất thường về số lượng bản sao DNA ti thể (mitochondrial DNA copy number), đột biến mất đoạn 4977-bp trên mtDNA và tích tụ gốc tự do (Reactive Oxygen Species - ROS) gây căng thẳng oxy hóa giảm khả năng tổng hợp ATP [2].
5. Các yếu tố di truyền và sinh lý có nguồn gốc từ bố mẹ
Di truyền và sinh lý có nguồn gốc từ bố mẹ đóng vai trò tiền đề quyết định chất lượng giao tử và tiềm năng phát triển của phôi.
- Đột biến gen phức hợp dưới vỏ noãn: Phức hợp SCMC (Subcortical Maternal Complex) gồm các protein do noãn cung cấp như PADI6, TLE6, KHDC3L, NLRP5 đóng vai trò thiết yếu trong điều hòa MZT. Các đột biến đồng hợp tử hoặc dị hợp tử kép trên các gen này (như PADI6, TLE6, KHDC3L) gây ngừng phát triển phôi tái diễn. Đột biến gen thoi phân bào TUBB8 ở mẹ gây bất thường trong quá trình hình thành và duy trì thoi phân bào, làm rối loạn sự sắp xếp và phân ly nhiễm sắc thể, từ đó dẫn đến thất bại phân bào và ngừng phát triển phôi từ giai đoạn hợp tử hoặc 8 tế bào.
- Yếu tố từ người mẹ (Maternal Factors): Tuổi mẹ cao (Advanced Maternal Age - AMA) làm suy giảm chất lượng noãn, tăng nguy cơ thoái hóa thoi phân bào, rối loạn liên kết nhiễm sắc thể và sai sót phân ly nhiễm sắc thể trong giảm phân. Giảm dự trữ buồng trứng (Poor Ovarian Reserve - POR) và lạc nội mạc tử cung cũng làm thay đổi môi trường dịch nang, ảnh hưởng tiềm năng phát triển của phôi [3].
- Yếu tố từ người bố (Paternal Factors): Yếu tố nam giới đóng góp quan trọng qua sự toàn vẹn cấu trúc chromatin và DNA tinh trùng. Ở trường hợp vô tinh nặng cần can thiệp thu nhận tinh trùng từ mô tinh hoàn, một số nghiên cứu ghi nhận sự khác biệt về kết quả phát triển phôi, trong đó có tỉ lệ ngừng phát triển tại các giai đoạn phân chia sớm; tuy nhiên, mối liên quan này còn phụ thuộc vào nguyên nhân vô tinh, đặc điểm di truyền và chất lượng tinh trùng thu nhận. Ngoài ra, sự thiếu hụt hoặc bất thường các yếu tố hoạt hóa noãn có nguồn gốc từ tinh trùng (sperm-borne oocyte-activating factors - SOAF) như protein PAWP, hoặc bất thường microRNA (như let-7b-5p) trong tinh trùng cũng làm gián đoạn phân chia của hợp tử [2].
III. Kết luận
Hiện tượng phôi ngừng phát triển sớm là kết quả tổng hòa của nhiều bất thường sinh học: từ mất ổn định nhiễm sắc thể (lệch bội nguyên phân), thất bại trong lập trình MZT/EGA, rối loạn tái lập trình di truyền biểu sinh, đến căng thẳng chuyển hóa tế bào dẫn đến trạng thái ngủ đông và đột biến đơn gen từ bố mẹ. Việc hiểu rõ các cơ chế phân tử này mở ra hướng đi mới trong y học sinh sản cá thể hóa như ứng dụng hệ thống nuôi cấy timelapse kết hợp PGT-A, tối ưu hóa môi trường nuôi cấy và can thiệp điều hòa chuyển hóa nhằm nâng cao tỉ lệ tạo phôi nang và cơ hội sinh con khỏe mạnh.
1. Yang, Y., et al., Human embryos arrest in a quiescent-like state characterized by metabolic and zygotic genome activation problems. bioRxiv, 2021: p. 2021.12. 19.473390.
2. Sfakianoudis, K., et al., Molecular drivers of developmental arrest in the human preimplantation embryo: a systematic review and critical analysis leading to mapping future research. International journal of molecular sciences, 2021. 22(15): p. 8353.
3. McCoy, R.C., et al., Meiotic and mitotic aneuploidies drive arrest of in vitro fertilized human preimplantation embryos. Genome medicine, 2023. 15(1): p. 77.
4. Orvieto, R., et al., Cleavage-stage human embryo arrest, is it embryo genetic composition or others? Reproductive Biology and Endocrinology, 2022. 20(1): p. 52.
5. Mora, J.R.H., et al., Single-cell multi-omic analysis profiles defective genome activation and epigenetic reprogramming associated with human pre-implantation embryo arrest. Cell