Nội dung chính
Đặt vấn đề
Hội chứng buồng trứng đa nang (Polycystic Ovary Syndrome - PCOS) là một trong những nguyên nhân hàng đầu gây vô sinh do rối loạn phóng noãn, ảnh hưởng đến khoảng 170 triệu phụ nữ trong độ tuổi sinh sản trên toàn cầu. Gần đây, một đồng thuận toàn cầu được công bố trên tạp chí The Lancet đã đề xuất đổi tên PCOS thành Hội chứng buồng trứng chuyển hóa đa nội tiết (Polyendocrine Metabolic Ovarian Syndrome - PMOS). Sự thay đổi này phản ánh chính xác hơn bản chất của hội chứng, nhấn mạnh đây không chỉ là một bệnh lý khu trú ở buồng trứng mà là một hội chứng rối loạn chuyển hóa và nội tiết đa hệ thống phức tạp, đặc trưng bởi tình trạng cường androgen, kháng insulin và viêm mạn tính [1].
Trong hỗ trợ sinh sản (Assisted Reproductive Technology - ART), bệnh nhân (BN) PMOS tuy đáp ứng kích thích buồng trứng mạnh và thu được số lượng noãn lớn, nhưng chất lượng noãn, phôi và tỷ lệ trẻ sinh sống lại không tương xứng, đi kèm nguy cơ sảy thai cao. Điều này cho thấy việc đánh giá tiềm năng noãn không thể chỉ dựa trên số lượng hay hình thái, vì ngay cả những phôi có hình thái bình thường vẫn có thể mang bất thường nhiễm sắc thể (NST). Tỷ lệ phôi lệch bội ở những phôi có hình thái đẹp chiếm tới 56% ở phụ nữ < 35 tuổi và tăng gần 80% ở phụ nữ từ 41 tuổi trở lên [2]. Đặc biệt ở BN PMOS, vi môi trường nang noãn bị thay đổi do tình trạng cường androgen, kháng insulin và các gốc oxy hóa (Reactive Oxygen Species - ROS), việc nghiên cứu các dấu ấn sinh học (biomarkers) phân tử để dự báo chính xác tiềm năng của noãn đang trở thành một hướng nghiên cứu được quan tâm [3].
Trong những năm gần đây, tế bào cumulus (Cumulus Cells - CCs) được xem là một nguồn vật liệu sinh học đầy triển vọng để đánh giá chất lượng noãn. CCs bao quanh và duy trì mạng lưới giao tiếp hai chiều với noãn thông qua các mối nối hở (gap junctions) và hệ thống túi ngoại bào (Extracellular Vesicles - EVs), CCs đóng vai trò cung cấp năng lượng và điều hòa trực tiếp tiềm năng phát triển của noãn. Việc phân tích CCs mang lại những chỉ số dự báo có tính định lượng và chính xác cao hơn. Đáng chú ý, CCs luôn được tách bỏ trước quá trình tiêm tinh trùng vào bào tương noãn (Intracytoplasmic Sperm Injection - ICSI). Do đó, việc thu nhận và phân tích hệ phiên mã (transcriptome) của CCs là một công cụ đánh giá hoàn toàn không xâm lấn và không ảnh hưởng đến noãn/phôi [2].
Bài viết này tập trung giải mã các biến đổi đặc hiệu trong biểu hiện gene và RNA không mã hóa ở CCs, qua đó làm rõ cơ chế phân tử về những tổn thương do hội chứng PMOS gây ra tại buồng trứng, đồng thời phân tích tiềm năng ứng dụng của chúng trong tiên lượng chất lượng noãn và hỗ trợ chiến lược lựa chọn phôi tại các trung tâm IVF.
Hệ phiên mã (transcriptome) của CCs: từ sinh lý bình thường đến biến đổi trong hội chứng PMOS
Trạng thái sinh lý bình thường của hệ phiên mã CCs
Phức hợp noãn - tế bào Cumulus (Cumulus–Oocyte Complex - COC) duy trì một mạng lưới giao tiếp hai chiều chặt chẽ nhằm đảm bảo sự trưởng thành của noãn. Ở những noãn có tiềm năng phát triển cao, hệ phiên mã CCs ghi nhận sự biểu hiện mạnh mẽ của các gene chức năng như Spp1, Fn1, Sdc1, Ngf, Mmp2 và Itgb3. Các gene này phối hợp điều hòa tái cấu trúc chất nền ngoại bào và tăng cường kết nối tế bào, tạo ra một vi môi trường tối ưu cho sự phát triển của noãn [4].
Về mặt chuyển hóa, quá trình đường phân (glycolysis) ở CCs hoạt động hiệu quả nhờ sự biểu hiện dồi dào của các gene enzyme đường phân (PFKP, PKM2) và kênh vận chuyển glucose (SLC2A4/GLUT4). Do khả năng tự đường phân kém, noãn phụ thuộc hoàn toàn vào nguồn pyruvate và lactate do CCs cung cấp liên tục thông qua các liên kết gap junction để hoàn thiện quá trình giảm phân [4].
Ở cấp độ điều hòa sau phiên mã, các exosomal microRNA (ex-miRs) trong túi ngoại bào của dịch nang đóng vai trò quan trọng giúp duy trì mạng lưới tín hiệu giữa tế bào cumulus và noãn. Ở trạng thái sinh lý, các ex-miRs như miR-320a và miR-19b duy trì các con đường tín hiệu thiết yếu cho quá trình trưởng thành noãn, đồng thời kìm hãm các gene thúc đẩy quá trình chết theo chu trình (apoptosis) như FOS, JUN và BAX. Sự kiểm soát này giúp bảo vệ tính toàn vẹn của COC và tiềm năng phát triển của noãn [5],[6].
Sự tái lập trình hệ phiên mã dưới tác động của vi môi trường PMOS
Khi hoạt động trong vi môi trường PMOS - đặc trưng bởi tình trạng cường androgen, kháng insulin và viêm mạn tính thì sự liên kết cộng sinh giữa noãn và CCs bị suy yếu và biến đổi sâu sắc. Hệ phiên mã CCs ở BN PMOS trải qua một quá trình tái lập trình bất thường (704 gene tăng biểu hiện và 1091 gene giảm biểu hiện so với nhóm chứng), chuyển từ trạng thái hỗ trợ sang kìm hãm sự phát triển của noãn [3]. Sự biến đổi này được thể hiện qua bốn nhóm rối loạn phân tử chính:
- Kìm hãm chuyển hóa năng lượng (Glycolysis) và rối loạn tín hiệu do kháng insulin: tình trạng kháng insulin ở BN PMOS làm giảm mạnh các kênh vận chuyển glucose (SLC2A1/GLUT1, SLC2A4/GLUT4) trên màng CCs. Mặc dù tế bào có nỗ lực bù trừ bằng cách tăng biểu hiện thụ thể insulin và Wnt (FZD3) nhằm tăng cường hấp thu năng lượng, nhưng sự bù trừ này vẫn thất bại trước rào cản kháng insulin. Hậu quả là hoạt động của các enzyme giới hạn tốc độ đường phân như PFKP và LDHA bị kìm hãm. Sự gián đoạn này đẩy phức hợp noãn vào trạng thái cạn kiệt ATP, gây rối loạn chức năng ty thể do sự giảm biểu hiện của 174 gene điều hòa màng trong và chuỗi hô hấp phức hợp I (NDRG4, UCP2, MRPS26) từ đó kìm hãm khả năng phân chia của noãn [2].
- Gia tăng ROS, kích hoạt quá trình apoptosis và mất ổn định di truyền: môi trường nội tiết PMOS kích hoạt sản sinh quá mức ROS đẩy CCs vào con đường apoptosis. Điều này thể hiện qua sự sụt giảm các miRNA bảo vệ (miR-320a, miR-19b) và gia tăng phân tử pro-apoptotic (miR-15a-5p) [2],[5]. Hệ quả là gây mất cân bằng tỷ lệ giữa gene thúc đẩy apoptosis và gene bảo vệ tế bào (BAX/BCL2), kích hoạt enzyme Caspase-3 gây thoái hóa tế bào.
|
Hình 1. Sự tăng biểu hiện các protein vi ống TUBA1C và TUBB8 liên quan đến rối loạn thoi vô sắc trong noãn PMOS [3] (Hình minh họa này được trích từ nghiên cứu thực hiện trên quần thể được chẩn đoán là PCOS theo tên gọi trước đây, theo đồng thuận toàn cầu năm 2026, các rối loạn này hiện được xem là thuộc phổ bệnh lý PMOS). |
Đặc biệt, phân tích RNA-seq cho thấy stress kéo dài làm tái hoạt hóa các yếu tố di truyền vận động (Transposable Elements - các trình tự DNA có khả năng di chuyển hoặc sao chép đến vị trí khác trong bộ gen), điển hình là sự tăng 24% họ retrovirus nội sinh ERV1 trên các NST 2, 3, 4, 5. Sự tái hoạt động của ERV1 làm tăng bất thường biểu hiện của 13 gene mã hóa protein, đặc biệt là các protein cấu trúc vi ống như TUBB8 và TUBA1C. Việc dư thừa các protein cấu trúc này làm gián đoạn quá trình lắp ráp thoi vô sắc - cơ chế chính khiến noãn PMOS thường xuyên ngừng giảm phân và phôi dễ bị lệch bội NST (Hình 1) [3].
Chú thích: Biểu hiện bất thường của các protein cấu trúc vi ống TUBA1C và TUBB8 trong noãn PMOS. Hình ảnh hiển vi trường sáng (BF) kết hợp nhuộm miễn dịch huỳnh quang cho thấy tín hiệu TUBA1C (đỏ) ở noãn giai đoạn GV và TUBB8 (đỏ) ở cả giai đoạn GV và metaphase II (MII) sau quá trình nuôi trưởng thành noãn non trong ống nghiệm (IVM), trong khi Hoechst (xanh) đánh dấu DNA. So với nhóm chứng, noãn PMOS biểu hiện cường độ tín hiệu TUBA1C và TUBB8 cao hơn rõ rệt, phản ánh sự tăng biểu hiện của các protein vi ống. Sau IVM, noãn nhóm chứng hình thành thoi vô sắc lưỡng cực với nhiễm sắc thể sắp xếp đúng trên mặt phẳng xích đạo, trong khi noãn PMOS xuất hiện thoi vô sắc mất tổ chức hoặc biến dạng, kèm theo sự phân bố nhiễm sắc thể bất thường. Các kết quả này cho thấy sự biểu hiện quá mức của TUBA1C và TUBB8 có liên quan đến rối loạn lắp ráp thoi vô sắc trong giảm phân, qua đó làm tăng nguy cơ ngừng trưởng thành noãn và phát sinh phôi lệch bội [3].
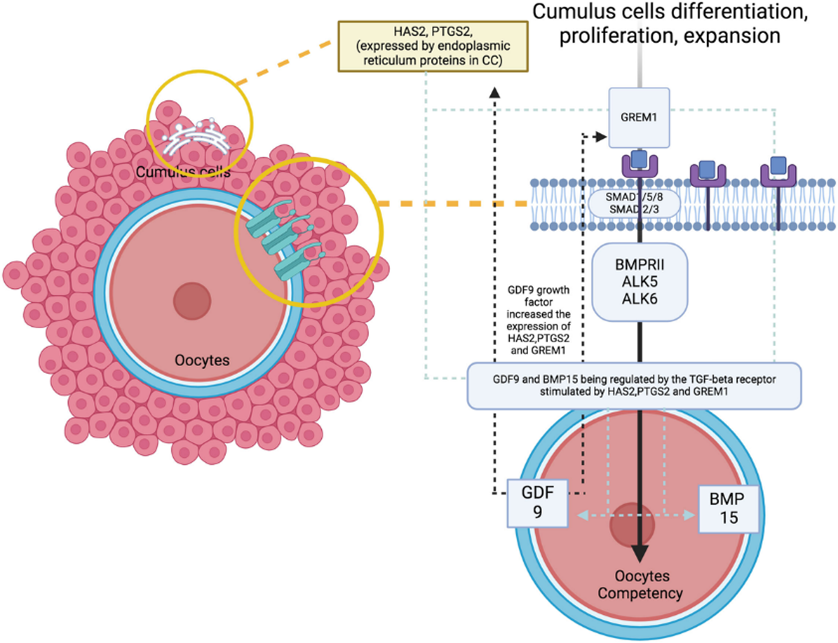
- Rối loạn chuyển hóa Lipid tại CCs: trong môi trường cường androgen đặc trưng của hội chứng PMOS, hệ phiên mã của CCs gặp phải những sai lệch nghiêm trọng trong quá trình chuyển hóa lipid và sinh tổng hợp steroid. Các phân tích mạng lưới tương tác protein (Protein–Protein Interaction - PPI) đã xác định được sự biểu hiện bất thường của một loạt các gene chính chịu trách nhiệm tổng hợp cholesterol và acid béo ngay tại CCs, bao gồm SREBF1, HMGCR, FASN, SCD, LDLR và LSS [7]. Sự gián đoạn của mạng lưới chuyển hóa lipid này làm suy yếu nghiêm trọng chức năng của CCs, khiến chúng không thể đáp ứng đầy đủ các chất nền thiết yếu cho noãn. Hệ quả là suy giảm các tín hiệu cận tiết quan trọng giúp trưởng thành noãn như GDF9 và BMP15, trực tiếp kìm hãm sự phát triển của COC và làm giảm chất lượng giao tử [3].
- Đứt gãy trục giao tiếp qua EVs và gián đoạn cấu trúc nền ngoại bào: bên cạnh các cầu nối bào tương trực tiếp, CCs còn tiếp nhận và truyền tín hiệu điều hòa thông qua các EVs chứa microRNA (ex-miRs) trong dịch nang. Tuy nhiên trục giao tiếp phân tử này bị phá vỡ nghiêm trọng ở BN PMOS. Dưới tác động của vi môi trường bệnh lý, sự gia tăng bất thường của các phân tử miRNA trong EVs, điển hình là miR-339-5p, đã ức chế trực tiếp protein SFPQ, từ đó kìm hãm các con đường truyền tín hiệu thiết yếu như MAPK/ERK1/2 - tín hiệu bắt buộc để kích hoạt các gene giãn nở sau đỉnh LH [5]. Hậu quả là giảm biểu hiện các gene tham gia tổng hợp hyaluronic acid và tái cấu trúc ECM, bao gồm HAS2, PTGS2 (COX2), TNFAIP6 và PTX3. Điều này làm giảm khả năng tổng hợp và tổ chức lại ECM, khiến khối CCs không thể giãn nở bình thường trước rụng trứng, khối CCs trở nên chặt hơn và kém linh hoạt, từ đó cản trở sự trao đổi chất giữa CCs và noãn, làm gián đoạn quá trình trưởng thành noãn và tăng tính nhạy cảm của CCs với quá trình apoptosis [3],[8].
Khả năng tiên lượng và định hướng ứng dụng tại Lab IVF
Phân tích hệ phiên mã CCs, cho phép thiết lập các biomarkers tiên lượng, hỗ trợ trực tiếp việc lựa chọn phôi trong phòng lab. Dựa trên dữ liệu định lượng phiên mã CCs cùng các mô hình phân tử đặc hiệu mang lại độ tin cậy vượt trội so với phương pháp đánh giá hình thái học đơn thuần.
Dự báo chất lượng noãn, phôi và tích hợp trí tuệ nhân tạo (AI): Sự kết hợp giữa công nghệ giải trình tự đơn tế bào (scRNA-seq) và thuật toán học máy (Machine Learning) đã tạo ra bước tiến đột phá trong chẩn đoán và tiên lượng PMOS. Các phân tích gần đây đã xác định bộ ba gene biomarker chẩn đoán chính xác gồm HLA-DRA, SRM, và CTSL. Các gene này liên quan mật thiết đến phản ứng viêm và sự xâm nhiễm của đại thực bào M2 tại vi môi trường buồng trứng, giúp phân loại chính xác các kiểu hình miễn dịch và dự báo tiềm năng phát triển của noãn [9].
Bên cạnh đó, các biomarker tại CCs được chia thành hai nhóm tiên lượng rõ rệt:
- Nhóm biomarker của các gene có lợi: sự biểu hiện tích cực của các gene cấu trúc nền ngoại bào và chuyển hóa như HAS2, GREM1, PTX3, Spp1, Fn1, Sdc1 và Ngf có mối tương quan thuận với tỷ lệ thụ tinh, phôi tốt ngày 5 và tỷ lệ làm tổ. Phân tích định lượng cho thấy biểu hiện HAS2 tăng gấp 6 lần ở nhóm tạo phôi tốt và PTX3 cao gấp 12 lần ở nhóm thụ tinh thành công so với nhóm thất bại. Bên cạnh đó, sự hiện diện dồi dào của các ex-miRNAs như miR-34c và miR-21 trong dịch nang cũng là dấu hiệu dự báo tích cực cho chất lượng noãn [5],[8].
- Nhóm biomarker của các gene bất lợi: sự gia tăng biểu hiện của các gene đáp ứng ROS và apoptosis như FOS và JUN, cùng các miRNA như miR-339-5p (kìm hãm con đường MAPK/ERK1/2) hay miR-133a-3p, là những chỉ số cảnh báo sớm tình trạng thoái hóa noãn và tiềm năng phát triển kém của phôi [4].
Khi tích hợp các biomarker phân tử này cùng dữ liệu động học hình thái từ hệ thống nuôi cấy liên tục (Time-lapse) vào mô hình học máy, khả năng tiên lượng và phân loại chất lượng phôi với độ chính xác rất cao [10]. Bước tiến này giúp lab IVF hiện thực hóa chiến lược chuyển đơn phôi mục tiêu, loại trừ những phôi có nguy cơ lệch bội cao, từ đó rút ngắn đáng kể thời gian mong con cho BN PMOS.
Ứng dụng kỹ thuật RT-qPCR: Công cụ sàng lọc phân tử an toàn và hiệu quả: thách thức lớn nhất trong IVF là thu thập dữ liệu phân tử mà không gây tổn thương đến noãn/phôi. Phân tích CCs bằng RT-qPCR (Quantitative Reverse Transcription PCR) đáp ứng hoàn toàn tiêu chí này và là công cụ tối ưu để đưa nghiên cứu vào thực tiễn lâm sàng nhờ các ưu điểm:
- Quy trình thu nhận hoàn toàn không xâm lấn: CCs được thu nhận ngay trong quá trình tách noãn trước ICSI, không phát sinh thêm can thiệp nào lên noãn. CCs của từng noãn được thu thập riêng biệt và mã hóa đồng nhất với noãn tương ứng, đảm bảo tính an toàn sinh học tuyệt đối [11].
- Tối ưu hóa thời gian và chi phí: từ mẫu CCs thu được, RNA được tách chiết để định lượng nhanh các cặp chỉ số biểu hiện mang tính đối kháng (ví dụ: tỷ lệ HAS2/PTGS2 hoặc BCL2/BAX). Với độ nhạy cao, chi phí hợp lý và thời gian trả kết quả chỉ từ 4 đến 6 giờ, kỹ thuật này hoàn toàn khả thi để triển khai song song với tiến độ vận hành thường quy của phòng lab [11].
- Hỗ trợ quyết định lâm sàng: thông tin định lượng gene thu được ngay trong ngày chọc hút sẽ cung cấp cơ sở sinh học khách quan. Kết quả này sẽ hỗ trợ cho bác sĩ lâm sàng trong việc quyết định chiến lược chuyển phôi tươi hay trữ phôi toàn bộ, đây là một quyết định rất quan trọng đối với BN PMOS nhằm phòng ngừa nguy cơ quá kích buồng trứng và tránh chuyển phôi vào môi trường nội mạc tử cung đang bị viêm hoặc chịu tác động bất lợi của cường androgen [7],[11].
Kết luận
Sự đồng thuận toàn cầu trong việc đổi tên PCOS thành PMOS đánh dấu một bước ngoặt quan trọng trong y học sinh sản, phản ánh đúng bản chất hệ thống của những rối loạn chuyển hóa, nội tiết và miễn dịch phức tạp. Trong bối cảnh vi môi trường nang noãn bị tác động bởi tình trạng cường androgen, kháng insulin và ROS, phương pháp đánh giá noãn và phôi dựa trên hình thái học truyền thống không phản ánh đúng tiềm năng phát triển sinh học thực sự và dẫn đến hiệu quả điều trị IVF chưa tối ưu ở nhóm BN PMOS.
Để vượt qua rào cản đó, việc giải mã hệ phiên mã của CCs là một giải pháp chẩn đoán đột phá và hoàn toàn không xâm lấn. Các bằng chứng hiện đại khẳng định CCs ở BN PMOS trải qua quá trình tái lập trình bất thường, đặc trưng bởi sự suy yếu mạng lưới cấu trúc chất nền ngoại bào, gián đoạn chuyển hóa năng lượng, kích hoạt apoptosis và đứt gãy trục giao tiếp qua EVs. Việc nhận diện các biomarker phân tử đặc hiệu, kết hợp RT-qPCR và machine learning cung cấp cơ sở sinh học khách quan, giúp hiện thực hóa chiến lược chuyển đơn phôi mục tiêu, cá thể hóa phác đồ điều trị, tối ưu tỷ lệ trẻ sinh sống và giảm thiểu gánh nặng cho hàng triệu phụ nữ mắc hội chứng PMOS trên toàn cầu.
- Teede, H. J., Khomami, M. B., Morman, R., Laven, J. S., Joham, A. E., Costello, M. F., ... & Piltonen, T. (2026). Polyendocrine metabolic ovarian syndrome, the new name for polycystic ovary syndrome: a multistep global consensus process. The Lancet, 407(10545), 2329-2339.
- Sayutti, N., Abu, M. A., & Ahmad, M. F. (2022). PCOS and role of cumulus gene expression in assessing oocytes quality. Frontiers in Endocrinology, 13, 843867.
- Li, J., Chen, H., Gou, M., Tian, C., Wang, H., Song, X., ... & Liu, L. (2021). Molecular features of polycystic ovary syndrome revealed by transcriptome analysis of oocytes and cumulus cells. Frontiers in cell and developmental biology, 9, 735684.
- Zhang, M., Wang, M. M., Zhang, F. L., He, N., Luo, M. J., Gong, S., ... & Tan, J. H. (2025). Expression Profiling and Function Analysis Identified New Cumulus Cells-Expressed Genes and miRNAs Predictive of Oocyte Developmental Potential. Cells, 14(11), 791.
- Voros, C., Athanasiou, D., Mavrogianni, D., Varthaliti, A., Bananis, K., Athanasiou, A., ... & Daskalakis, G. (2025). Exosomal communication between cumulus–oocyte complexes and granulosa cells: a new molecular axis for oocyte competence in human-assisted reproduction. International journal of molecular sciences, 26(11), 5363.
- Azad, F. S. (2026). Gene and non-coding RNA expression in human cumulus cells in polycystic ovary syndrome: A systematic review. Metabolism Open, 29, 100441.
- Liao, B., Qi, X., Yun, C., Qiao, J., & Pang, Y. (2022). Effects of androgen excess-related metabolic disturbances on granulosa cell function and follicular development. Frontiers in endocrinology, 13, 815968.
- Faizal, A. M., Elias, M. H., Jin, N. M., Abu, M. A., Syafruddin, S. E., Zainuddin, A. A., ... & Karim, A. K. A. (2024). Unravelling the role of HAS2, GREM1, and PTGS2 gene expression in cumulus cells: implications for human oocyte development competency-a systematic review and integrated bioinformatic analysis. Frontiers in Endocrinology, 15, 1274376.
- Xu, K., Zhang, S., Guo, L., Liu, T., Li, Y., & Zhang, Y. (2026). Interpreting the molecular and cellular landscape of PCOS through bulk transcriptomics, single-cell transcriptomics and machine learning. Journal of Ovarian Research.
- Esmaeilivand, M., & Nasr-Esfahani, M. H. (2025). Embryo-secreted microRNAs enable non-invasive assessment of chromosomal status and viability in in vitro fertilization. Frontiers in Cell and Developmental Biology, 13, 1747211.
- Massoud, G., Spann, M., Vaught, K. C., Das, S., Dow, M., Cochran, R., ... & Singh, B. (2024). Biomarkers assessing the role of cumulus cells on IVF outcomes: A systematic review. Journal of assisted reproduction and genetics, 41(2), 253-275.