Nội dung chính
- Đặt vấn đề
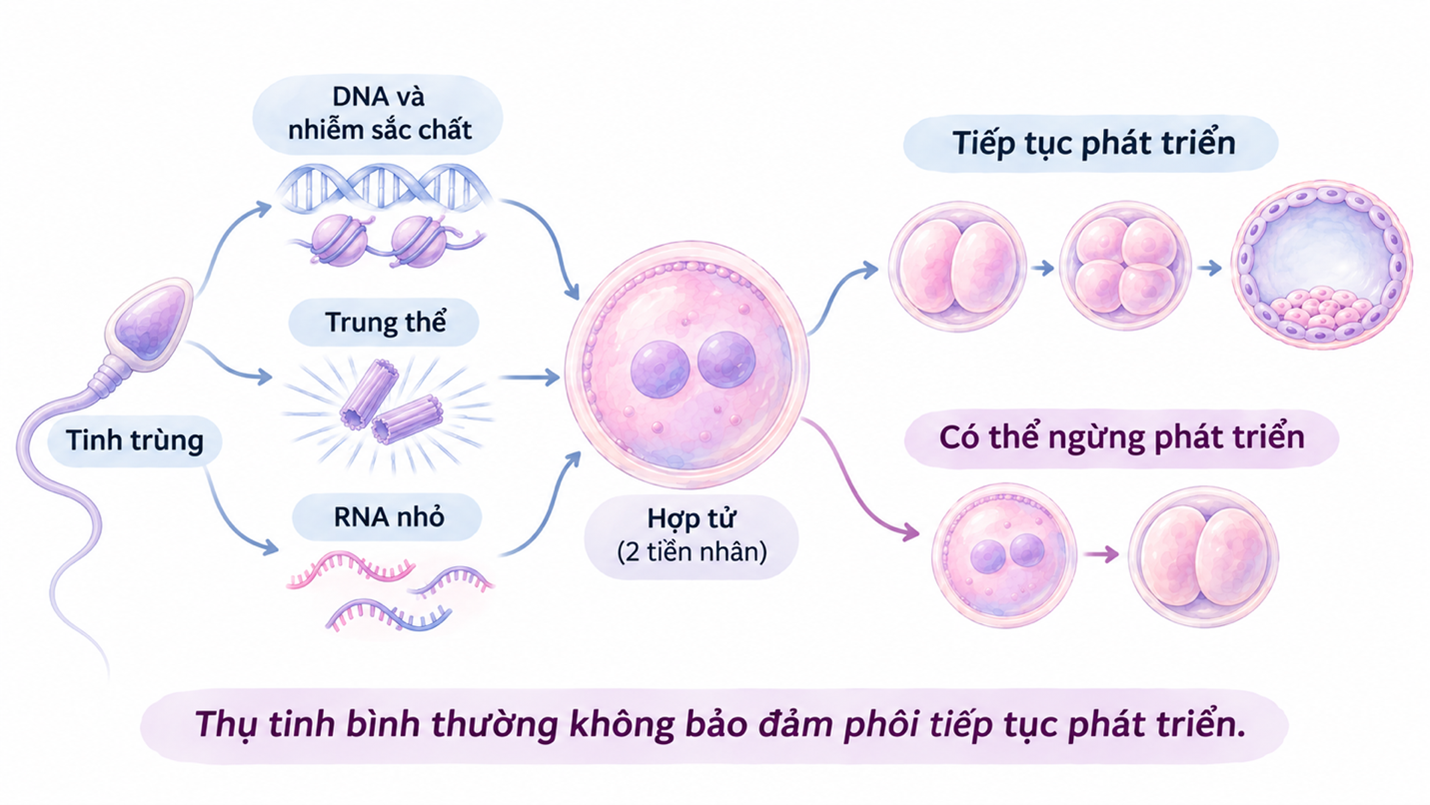
Trong labo thụ tinh trong ống nghiệm (In Vitro Fertilization – IVF), tình trạng phôi ngừng phát triển thường được xác định khi phôi không tiếp tục đạt những mốc phân chia hoặc hình thành phôi nang trong thời gian theo dõi. Đánh giá hình thái và ghi hình liên tục cho phép nhận diện diễn tiến bất thường, nhưng không trực tiếp phản ánh hoạt động chuyển hóa hoặc những thay đổi phân tử bên trong tế bào. Vì vậy, phân tích môi trường sau nuôi cấy được nghiên cứu nhằm bổ sung thông tin mà không cần lấy tế bào phôi.
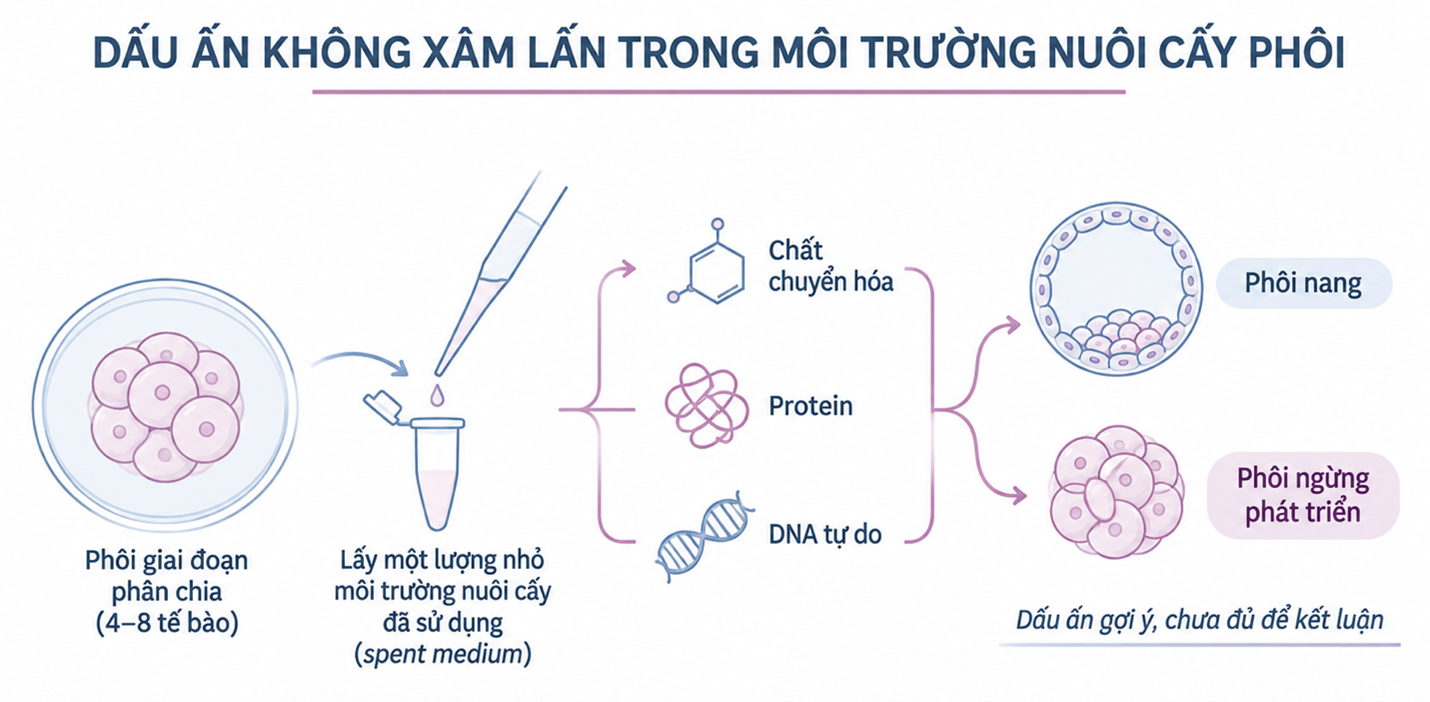
Phôi thu nhận cơ chất, giải phóng sản phẩm chuyển hóa và có thể đưa protein hoặc vật chất di truyền vào môi trường. Việc phân tích các thành phần này được kỳ vọng giúp nhận diện nguy cơ phôi ngừng phát triển. Tuy nhiên, sự khác biệt giữa các nhóm phôi chưa đủ để xây dựng tiêu chí chọn hoặc loại phôi. Bài viết tổng hợp bằng chứng về chất chuyển hóa, protein và acid deoxyribonucleic (DNA) tự do, cùng những giới hạn khi ứng dụng trong labo IVF.
- Môi trường nuôi cấy phản ánh hoạt động của phôi đến mức nào?
Môi trường nuôi cấy đã sử dụng (Spent Embryo Culture Medium – SECM) chứa những thành phần có sẵn từ công thức ban đầu, đồng thời có thể thay đổi do sự hấp thu và giải phóng chất của phôi. Nếu so sánh với môi trường đối chứng không có phôi, một phần thay đổi nồng độ có thể cung cấp thông tin về hoạt động chuyển hóa trong khoảng thời gian thu mẫu. Tuy nhiên, các biến động này còn phụ thuộc thể tích giọt môi trường, thời gian nuôi, loại môi trường, lớp dầu phủ và điều kiện thao tác. Không thể mặc nhiên xem toàn bộ tín hiệu phân tích được đều có nguồn gốc từ phôi[1].
Mức tiêu thụ glucose, pyruvate, acid amin và giải phóng lactate thay đổi theo giai đoạn. Vì thế, mẫu môi trường từ phôi ngày 3 không thể so sánh trực tiếp với mẫu ngày 5 nếu chưa chuẩn hóa. Số phôi bào còn hoạt động và thời gian tiếp xúc cũng ảnh hưởng đến nồng độ đo được. Dấu ấn thu ở thời điểm cuối có thể xuất hiện sau khi phôi đã ngừng phát triển.
Tổng quan của Alizadeh Moghadam Masouleh và cộng sự (2025) xác định 49 công bố gốc về chuyển hóa trong môi trường nuôi cấy phôi người từ năm 1989 đến 2024. Các nghiên cứu sử dụng nhiều hệ thống phân tích, chỉ tiêu và thiết kế khác nhau. Một khó khăn quan trọng là thành phần định lượng của một số môi trường thương mại không được công bố đầy đủ, gây hạn chế khi so sánh mức tiêu thụ cơ chất giữa các labo. Vì vậy, việc chuẩn hóa dữ liệu nền và quy trình lấy mẫu là điều kiện cần trước khi xây dựng giá trị tham chiếu cho từng chất[1].
- Bằng chứng về chuyển hóa ở phôi tiếp tục phát triển và phôi ngừng phát triển
Nadal-Desbarats và cộng sự (2013) sử dụng phổ cộng hưởng từ hạt nhân (Nuclear Magnetic Resonance – NMR) để phân tích môi trường của 39 phôi người sau khoảng thời gian nuôi từ ngày 3 đến ngày 4. Khi theo dõi đến ngày 5, có 19 phôi tiếp tục phát triển và 20 phôi không đạt phôi nang. Mặc dù nhóm phôi tiếp tục phát triển có một số khác biệt về đặc điểm chuyển hóa, sự khác biệt không đạt ý nghĩa thống kê. Mô hình phân tích nhiều biến cũng không tách được hai nhóm thành những cụm rõ ràng. Công trình này cho thấy việc đo được phổ chuyển hóa ở mẫu rất nhỏ chưa đủ bảo đảm khả năng nhận diện phôi ngừng phát triển trên từng trường hợp[2].
Gần đây hơn, Adel và cộng sự (2025) kết hợp động học phân chia với mức sử dụng acid amin trong môi trường nuôi của 161 phôi, được tạo từ noãn của 30 phụ nữ. Trong đó, 99 phôi phát triển đến phôi nang và 62 phôi không hoàn tất quá trình này. Nhóm nghiên cứu sử dụng sắc ký lỏng ghép khối phổ hai lần (Liquid Chromatography–Tandem Mass Spectrometry – LC-MS/MS) để đánh giá acid amin và hệ thống ghi hình liên tục (time-lapse) để xác định các mốc phân chia. Trong phân tích riêng từng biến, thời điểm xuất hiện tiền nhân, thời điểm phân chia và mức sử dụng một số acid amin như valine, phenylalanine, proline có liên quan đến khả năng tạo phôi nang[3].
Tuy nhiên, trong phân tích đa biến, chỉ thời điểm xuất hiện tiền nhân (time of pronuclear appearance – tPNa) còn là yếu tố dự đoán độc lập có ý nghĩa thống kê. Điều này làm giảm cơ sở để xem các acid amin được ghi nhận là những dấu ấn riêng lẻ đủ mạnh cho việc chọn phôi. Cỡ mẫu tập trung trong 30 chu kỳ và chưa có kiểm chứng trên nhóm bệnh nhân hoặc labo độc lập. Vì vậy, ý nghĩa thực tế của việc bổ sung xét nghiệm acid amin vào hình thái và time-lapse vẫn cần nghiên cứu thêm[3].
- Protein và dấu ấn đa omics trong môi trường nuôi cấy
Ngoài chất chuyển hóa, môi trường còn có thể chứa protein do phôi tiết ra hoặc giải phóng khi tế bào thoái hóa. Phân tích đồng thời protein và chất chuyển hóa được gọi là tiếp cận đa omics (multi-omics). Tuy nhiên, nguồn gốc từng protein không phải lúc nào cũng xác định được, nhất là khi môi trường có albumin.
Deng và cộng sự (2024) khảo sát 84 mẫu môi trường từ các phôi nang người bằng phương pháp phân tích protein và chất chuyển hóa có độ nhạy cao. Nhóm nghiên cứu ghi nhận 504 protein và 189 chất chuyển hóa, trong đó có 9 protein và 32 chất chuyển hóa khác biệt giữa nhóm phôi nang được xếp loại hình thái tốt và kém hơn. Ở nhóm phôi có hình thái tốt, một số dấu ấn còn liên quan đến kết quả làm tổ, với 41 protein và 4 chất chuyển hóa khác biệt giữa các nhóm kết cục[4].
Tuy nhiên, toàn bộ mẫu được lấy từ phôi đã hình thành phôi nang, nên kết quả chưa thể dùng để dự đoán phôi ngày 3 sẽ ngừng phát triển. Các dấu ấn cũng cần được kiểm chứng trên mẫu độc lập trước khi ứng dụng[4].
- Những kỹ thuật phân tích mới và giới hạn của kết quả dự đoán
Phổ Raman được nghiên cứu như một phương pháp nhận diện đặc điểm dao động phân tử mà không cần đánh dấu trực tiếp lên phôi. Ishigaki và cộng sự (2025) khảo sát môi trường nuôi phôi người bằng kỹ thuật này và ghi nhận sự khác biệt về tín hiệu liên quan đến protein giữa nhóm tạo phôi nang và nhóm ngừng trước giai đoạn đó. Nhóm nghiên cứu cũng mô tả sự biến đổi độ acid–kiềm (pH) trong những loại môi trường và giai đoạn xử lý khác nhau[5]. Tuy nhiên, phổ Raman phản ánh tín hiệu tổng hợp của nhiều thành phần trong mẫu. Các khác biệt ghi nhận không nhất thiết bắt nguồn từ một con đường chuyển hóa cụ thể. Nghiên cứu cũng chưa xác lập ngưỡng quyết định áp dụng thường quy.
Năm 2026, Tong và cộng sự phát triển thiết bị vi lưu sử dụng tín hiệu hóa phát quang để định lượng đồng thời glucose, lactate và pyruvate trong khoảng 3 microlit môi trường đã sử dụng. Nghiên cứu gồm 61 mẫu xây dựng mô hình và 108 mẫu dùng để đánh giá mô hình trên những chu kỳ chuyển một phôi nang. Phôi liên quan đến kết quả thai lâm sàng thuận lợi có xu hướng tiêu thụ glucose và pyruvate cao hơn, đồng thời tạo lactate nhiều hơn. Mô hình kết hợp dữ liệu chuyển hóa với hình thái đạt diện tích dưới đường cong đặc trưng hoạt động của bộ phân loại (area under the receiver operating characteristic curve – AUC) khoảng 0,92 theo báo cáo của nhóm tác giả[6].
Kết quả này đáng chú ý về mặt kỹ thuật, nhưng cần đặt đúng câu hỏi nghiên cứu. Các mẫu được thu từ phôi nang đã được lựa chọn để chuyển, kết cục khảo sát là thai lâm sàng, không phải khả năng dự đoán phôi giai đoạn phân chia sẽ ngừng phát triển. Hơn nữa, chỉ số AUC từ một nghiên cứu chưa chứng minh công cụ giúp tăng tỷ lệ trẻ sinh sống khi đưa vào quy trình lựa chọn phôi. Những khác biệt giữa nhóm xây dựng mô hình và nhóm đánh giá, cùng đặc điểm bệnh nhân, vẫn cần được xem xét trước khi suy rộng[6].
- DNA tự do trong môi trường có thể bổ sung thông tin gì?
Một hướng tiếp cận khác là phân tích DNA tự do ngoài tế bào (cell-free DNA – cfDNA) được phát hiện trong môi trường nuôi. Các đoạn DNA này có thể được giải phóng từ những tế bào phôi trải qua quá trình phân chia hoặc thoái hóa, nhưng cũng có nguy cơ lẫn DNA có nguồn gốc từ tế bào khác hoặc quá trình thao tác. Xét nghiệm di truyền tiền làm tổ không xâm lấn nhằm phát hiện lệch bội (Non-Invasive Preimplantation Genetic Testing For Aneuploidy – niPGT-A) sử dụng cfDNA được đề xuất để thay thế hoặc bổ sung thông tin từ sinh thiết tế bào lá nuôi. Tuy nhiên, cfDNA không phải dấu ấn đặc hiệu của tình trạng phôi ngừng phát triển.
Trong nghiên cứu tiến cứu tại Việt Nam, Nguyen và cộng sự (2025) thu 100 cặp mẫu môi trường và mẫu sinh thiết tế bào lá nuôi từ 44 cặp vợ chồng có chỉ định xét nghiệm lệch bội. Tỷ lệ khuếch đại thành công DNA từ môi trường là 82%, 77 mẫu cho kết quả giải trình tự rõ để phân tích. Mức phù hợp chung giữa xét nghiệm không xâm lấn và mẫu sinh thiết là 63,6%, với độ nhạy phát hiện lệch bội 57,1% và độ đặc hiệu 67,3%. Đáng lưu ý, 4/6 phôi nang được xếp lệch bội từ môi trường, dù sinh thiết cho kết quả nguyên bội, vẫn dẫn đến trẻ sinh sống[7]. Điều này cảnh báo nguy cơ loại nhầm phôi nếu sử dụng kết quả cfDNA đơn lẻ.
Navarro-Sánchez và cộng sự (2026) công bố nghiên cứu đa trung tâm gồm 2.539 phôi nang từ 716 người bệnh. Khi so sánh với kết quả sinh thiết tế bào lá nuôi, mức phù hợp của cfDNA trong môi trường đạt 79,1% ở các chu kỳ sử dụng noãn tự thân, với dao động theo trung tâm hoặc nhóm mẫu. Mức phù hợp đạt 87,0% khi so với mẫu khối tế bào bên trong ở những phôi có dữ liệu tương ứng. Kết quả cho thấy hiệu năng có thể cải thiện khi quy trình lấy mẫu được chuẩn hóa, nhưng vẫn còn các trường hợp không trùng khớp. Hơn nữa, toàn bộ nhóm nghiên cứu gồm phôi nang đã đến giai đoạn sinh thiết, không phản ánh trực tiếp hiệu năng ở những phôi đã ngừng phát triển trước đó[8].
Ngay cả khi phù hợp với kết quả sinh thiết phôi nang, xét nghiệm cfDNA cũng chưa xác định được thời điểm giải phóng DNA hoặc cơ chế làm phôi ngừng phát triển.
- Từ khả năng phân biệt nhóm phôi đến lợi ích lâm sàng
Một dấu ấn mới cần được đánh giá về độ ổn định của phép đo, khả năng dự đoán trên dữ liệu độc lập và lợi ích khi sử dụng trong thực hành. Việc phân biệt phôi đã đạt phôi nang với phôi đã ngừng phát triển khác với dự đoán kết cục khi phôi vẫn đang phân chia. Vì vậy, thời điểm thu mẫu và tiêu chí xác định ngừng phát triển phải được quy định từ trước.
Thử nghiệm ngẫu nhiên của Vergouw và cộng sự (2012) là ví dụ về khoảng cách giữa dấu ấn chuyển hóa và hiệu quả thực tế. Nghiên cứu phân ngẫu nhiên 417 cặp vợ chồng vào nhóm lựa chọn phôi dựa trên hình thái hoặc kết hợp hình thái với phổ cận hồng ngoại (near-infrared spectroscopy – NIR) từ môi trường nuôi. Tỷ lệ trẻ sinh sống trong phân tích theo phân nhóm ban đầu là 31,7% ở nhóm chỉ đánh giá hình thái và 26,8% ở nhóm có bổ sung NIR. Sự khác biệt không có ý nghĩa thống kê. Kết quả không phủ nhận giá trị nghiên cứu của chuyển hóa phôi, nhưng cho thấy một chỉ số dự đoán mới không tự động cải thiện kết cục lâm sàng[9].
Cần phân biệt dự đoán hình thành phôi nang, tình trạng nguyên bội, làm tổ và trẻ sinh sống. Với mục tiêu nhận diện phôi ngừng phát triển, nghiên cứu cần thu mẫu trước khi biết kết cục, theo dõi đến ngày 5 hoặc 6 và kiểm chứng trên dữ liệu độc lập. Việc chỉ chọn phôi đã có kết cục rõ ràng dễ làm độ chính xác của mô hình bị đánh giá cao hơn thực tế.
- Kết luận
Môi trường nuôi cấy đã sử dụng chứa những dấu ấn có thể phản ánh hoạt động chuyển hóa, xử lý protein và giải phóng vật chất di truyền của phôi. Tuy nhiên, khả năng dự đoán ngừng phát triển chưa nhất quán và chịu ảnh hưởng của thời điểm thu mẫu, công thức môi trường và kỹ thuật phân tích. Kết quả thuận lợi trên nhóm phôi nang hoặc sau chuyển phôi không thể tự động áp dụng cho phôi giai đoạn phân chia. Trong labo IVF, các dấu ấn không xâm lấn hiện chủ yếu có giá trị nghiên cứu; ứng dụng thường quy đòi hỏi kiểm chứng độc lập và bằng chứng về lợi ích lâm sàng.
- Alizadeh Moghadam Masouleh A, Eftekhari-Yazdi P, Ebrahimi Sadrabadi A, et al. Embryo metabolism as a novel non-invasive preimplantation test: nutrients turn over and metabolomic analysis of human spent embryo culture media (SECM). Hum Reprod Update. 2025;31(5):405-444. doi:10.1093/humupd/dmaf015.
- Nadal-Desbarats L, Veau S, Blasco H, et al. Is NMR metabolic profiling of spent embryo culture media useful to assist in vitro human embryo selection? MAGMA. 2013;26(2):193-202. doi:10.1007/s10334-012-0331-x.
- Adel N, Abdulghaffar S, Elmahdy M, et al. Morphokinetics and amino acid consumption in pre-implantation embryo development: predictors of blastocyst formation. Eur J Obstet Gynecol Reprod Biol. 2025;313:114640. doi:10.1016/j.ejogrb.2025.114640.
- Deng S, Xu Y, Warden AR, et al. Quantitative Proteomics and Metabolomics of Culture Medium from Single Human Embryo Reveal Embryo Quality-Related Multiomics Biomarkers. Anal Chem. 2024;96(29):11832-11844. doi:10.1021/acs.analchem.4c01494.
- Ishigaki M, Tamano R, Inagaki N, et al. Liquid biopsy of embryo culture medium for assessing human embryo viability using Raman spectroscopy. Sci Rep. 2025;15:33986. doi:10.1038/s41598-025-11195-4.
- Tong W, Shi J, Yu Z, et al. Embryo metabolite analysis and implantation potential prediction using chemiluminescent microfluidic chips with dielectric wetting valves. Nat Commun. 2026;17:3331. doi:10.1038/s41467-026-69999-5.
- Nguyen HTT, Luu TTM, Do LT, et al. Non-invasive preimplantation genetic testing for aneuploidy using cell-free DNA in blastocyst culture medium. J Assist Reprod Genet. 2025;42(8):2587-2595. doi:10.1007/s10815-025-03510-9.
- Navarro-Sánchez L, Sakkas D, Frantz N, et al. Can Cell-Free DNA in the Culture Medium Predict the Chromosomal Constitution of Preimplantation Embryos? Final Results from a Multicenter Study with 2539 Blastocysts. Genes (Basel). 2026;17(4):416. doi:10.3390/genes17040416.
- Vergouw CG, Kieslinger DC, Kostelijk EH, et al. Day 3 embryo selection by metabolomic profiling of culture medium with near-infrared spectroscopy as an adjunct to morphology: a randomized controlled trial. Hum Reprod. 2012;27(8):2304-2311. doi:10.1093/humrep/des175.