Nội dung chính
- Đặt vấn đề
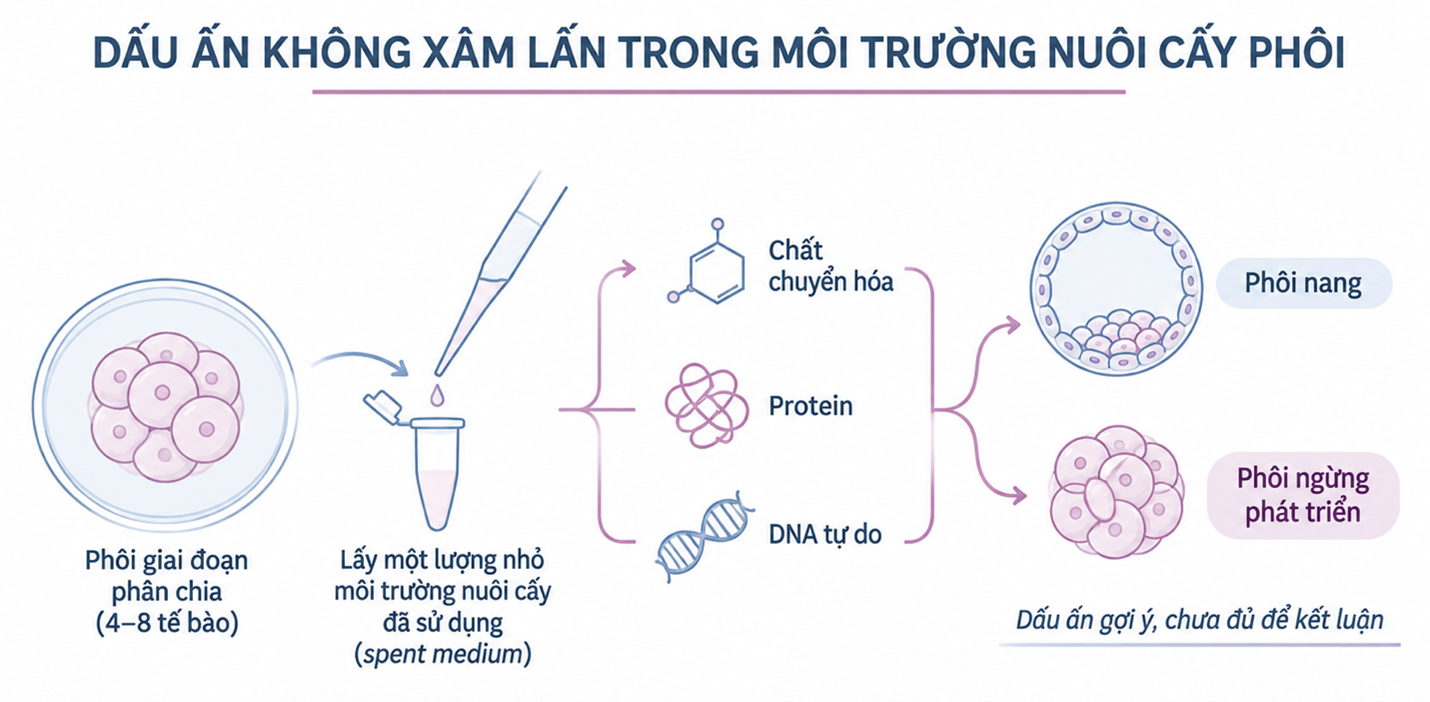
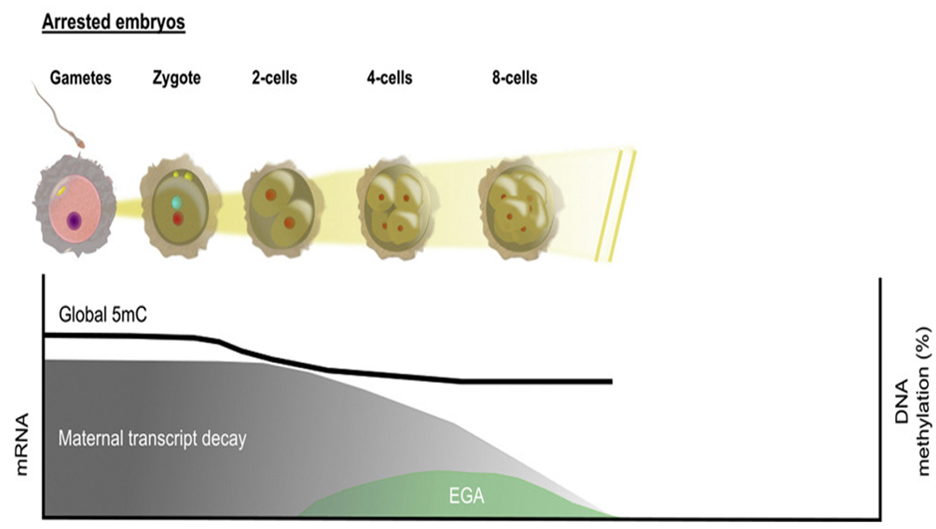
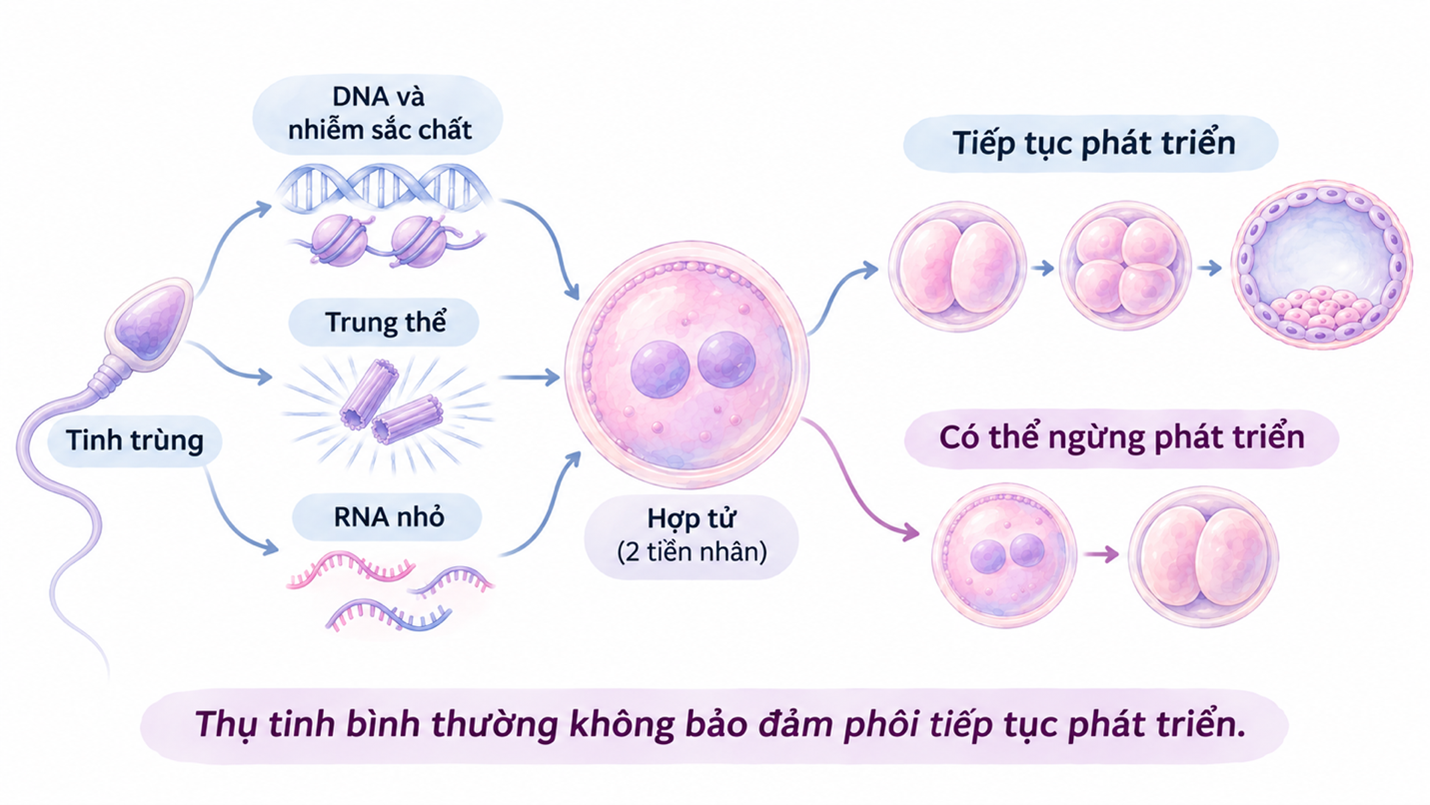
Hai tiền nhân thường được sử dụng để xác nhận thụ tinh bình thường trong labo thụ tinh trong ống nghiệm (In Vitro Fertilization – IVF). Tuy nhiên, một số hợp tử không thực hiện được lần phân chia đầu tiên, trong khi những phôi khác phân chia đến ngày 3 nhưng không hình thành phôi nang. Tinh trùng không chỉ cung cấp bộ nhiễm sắc thể đơn bội từ bố mà còn mang theo những cấu trúc tham gia tổ chức bộ máy phân chia và các phân tử điều hòa. Chức năng của những thành phần này có thể tiếp tục được thể hiện sau khi hợp tử đã hình thành.
Các nghiên cứu về tinh trùng thường tập trung vào tổn thương acid deoxyribonucleic (DNA), trong khi những thành phần khác như trung thể, cấu trúc nhiễm sắc chất và acid ribonucleic (RNA) nhỏ cũng được quan tâm. Bài viết phân tích đóng góp của tinh trùng sau khi hợp tử đã hình thành, tập trung vào khả năng phôi tiếp tục phân chia, đồng thời phân biệt kết quả trực tiếp trên phôi người với các cơ chế mới được chứng minh trong mô hình động vật.
- Bộ gen tinh trùng và khả năng tiếp tục phát triển của phôi
Sau khi xâm nhập vào noãn, nhiễm sắc chất tinh trùng được tái tổ chức để hình thành tiền nhân đực. Bộ gen có nguồn gốc từ bố sau đó được nhân đôi và phân bố qua các lần nguyên phân. Việc xuất hiện tiền nhân cho thấy thụ tinh đã diễn ra, nhưng không chứng minh DNA của tinh trùng hoàn toàn không có tổn thương. Một số sai lệch có thể chỉ bộc lộ khi DNA được sao chép hoặc khi phôi tăng hoạt động biểu hiện gen.
Phân mảnh DNA tinh trùng (Sperm DNA Fragmentation – SDF) là thuật ngữ mô tả tổn thương liên quan đến sự đứt gãy DNA. Tổn thương có thể xuất hiện trong quá trình sinh tinh, hoàn thiện nhiễm sắc chất hoặc khi tinh trùng chịu stress oxy hóa. Tuy nhiên, những phương pháp xét nghiệm thường dùng không đo lường hoàn toàn giống nhau. Chỉ số phân mảnh DNA (DNA Fragmentation Index – DFI) còn phụ thuộc kỹ thuật và cách xác định ngưỡng, nên không thể xem một tỷ lệ phần trăm là mức nguy cơ chung cho mọi xét nghiệm hoặc mọi phương pháp thụ tinh.
Nghiên cứu hồi cứu của Lou và cộng sự (2026) sàng lọc 5.637 chu kỳ điều trị, trong đó 3.948 chu kỳ đáp ứng tiêu chuẩn phân tích. Ở nhóm phôi nang được xét nghiệm di truyền tiền làm tổ phát hiện lệch bội (Preimplantation Genetic Testing For Aneuploidy – PGT-A), tỷ lệ lệch bội trong nhóm DFI cao đạt 38,19%, so với 24,42% ở nhóm DFI thấp. Tỷ số chênh đã điều chỉnh (Adjusted Odds Ratio – aOR) là 1,35, với khoảng tin cậy 95% (95% confidence interval – 95% CI) từ 1,10 đến 1,81. Mối liên hệ thể hiện rõ hơn ở một số nhóm có tuổi người nữ cao hoặc tinh dịch đồ bất thường. Tuy nhiên, nghiên cứu được thực hiện tại một trung tâm và chỉ khảo sát di truyền ở những phôi nang đủ điều kiện sinh thiết, không bao gồm toàn bộ phôi ngừng phát triển trước đó[1].
- Vì sao những nghiên cứu về phân mảnh DNA cho kết quả khác nhau?
Tổn thương DNA có thể ảnh hưởng đến nhiều mốc của phát triển phôi, nhưng các nghiên cứu không nhất thiết ghi nhận sự khác biệt tại cùng thời điểm. Altakroni và cộng sự (2025) đánh giá tổn thương DNA trong mẫu tinh trùng đã qua chuẩn bị bằng phép thử điện di đơn bào và một dấu ấn tổn thương base. Nhóm nghiên cứu ghi nhận mối liên hệ bất lợi với chất lượng tinh dịch và tỷ lệ thụ tinh, nhưng không tìm thấy mối liên hệ có ý nghĩa với tỷ lệ phôi phân chia hoặc trẻ sinh sống. Kết quả cho thấy phát hiện tổn thương DNA trong mẫu tinh trùng không đồng nghĩa với việc có thể dự đoán một cách nhất quán mọi kết cục sau thụ tinh[2].
Ngược lại, Machałowski và cộng sự (2025) phân tích hồi cứu 870 chu kỳ tiêm tinh trùng vào bào tương noãn (Intracytoplasmic Sperm Injection – ICSI). SDF được đo bằng xét nghiệm phân tán nhiễm sắc chất tinh trùng (Sperm Chromatin Dispersion – SCD). Nhóm có SDF trên 20% ghi nhận một số kết quả phôi học bất lợi hơn nhóm còn lại. Trong mô hình đa biến, mỗi mức tăng một điểm phần trăm SDF liên quan đến tỷ số chênh đạt phôi nang chất lượng cao ở ngày 5 bằng 0,975. Tuy nhiên, nghiên cứu không ghi nhận mối liên hệ có ý nghĩa thống kê với thai lâm sàng. Đây là khác biệt giữa chỉ tiêu hình thái phôi với kết cục điều trị, không nên diễn giải rằng tăng SDF chắc chắn làm phôi ngừng phát triển[3].
Các kết quả chưa thống nhất có thể liên quan đến phương pháp đo SDF, kỹ thuật thụ tinh, đặc điểm noãn và cách xác định kết cục. Tỷ lệ hình thành phôi nang, tỷ lệ phôi nang chất lượng tốt và tỷ lệ trẻ sinh sống không thể dùng thay thế cho nhau. Khi đánh giá ảnh hưởng từ tinh trùng, cần xác định mẫu số và mốc phát triển của từng chỉ tiêu, tránh xem mọi thất bại tạo phôi nang đều là phôi ngừng phân chia sớm.
- Sự phối hợp giữa tổn thương DNA của tinh trùng và khả năng đáp ứng của noãn
Sau thụ tinh, một phần tổn thương DNA có nguồn gốc từ tinh trùng có thể được nhận diện và xử lý nhờ hệ thống sửa chữa của noãn và hợp tử. Tuy nhiên, hiệu quả của quá trình này phụ thuộc loại và mức độ tổn thương, trạng thái tế bào chất cũng như các yếu tố của noãn. Vì vậy, cùng một mức SDF đo trên mẫu tinh dịch không nhất thiết dẫn đến kết quả phát triển tương đương ở các chu kỳ có đặc điểm noãn khác nhau. Cũng cần lưu ý xét nghiệm trên mẫu tinh dịch chỉ phản ánh một quần thể tinh trùng, không đo trực tiếp DNA của tinh trùng đã thụ tinh cho từng noãn.
Karabulut và cộng sự (2025) khảo sát hồi cứu 540 cặp vợ chồng thực hiện ICSI, phân nhóm theo tuổi người nữ và mức SDF. Trong nhóm người nữ trên 40 tuổi, SDF cao đi kèm kết quả chất lượng phôi, hình thành phôi nang và một số kết cục lâm sàng kém hơn. Những khác biệt tương tự không được ghi nhận rõ ở các nhóm tuổi trẻ hơn. Kết quả phù hợp với giả thuyết rằng đáp ứng của noãn có thể điều chỉnh mức độ ảnh hưởng từ tổn thương DNA của tinh trùng. Tuy nhiên, nghiên cứu không đo trực tiếp khả năng sửa chữa DNA trong từng noãn, nên không thể dùng dữ liệu này để khẳng định sự suy giảm cơ chế sửa chữa là lời giải thích duy nhất[4].
- Trung thể có nguồn gốc từ tinh trùng và bộ máy phân chia đầu tiên
Ngoài DNA, tinh trùng người còn cung cấp các trung tử tham gia tái lập hệ thống tổ chức vi ống của hợp tử. Trung tử là cấu trúc trụ vi ống, trung thể là trung tâm tổ chức vi ống được hình thành nhờ trung tử và vật chất quanh trung tử. Mạng vi ống hỗ trợ sự di chuyển của các tiền nhân và tham gia hình thành thoi phân bào. Những chức năng này liên quan trực tiếp đến các hoạt động cần thiết trước và trong lần phân chia đầu tiên.
Nghiên cứu của Simerly và cộng sự (1995) sử dụng hình ảnh trên noãn người sau thụ tinh, cho thấy tinh trùng cung cấp thành phần trung thể tham gia hình thành mạng vi ống hình sao và hỗ trợ sự tiếp cận giữa các tiền nhân. Kết quả xác lập vai trò cấu trúc của tinh trùng ngoài việc mang bộ gen, dù một phần các trường hợp bất thường được quan sát là thất bại thụ tinh chứ không phải phôi đã hình thành hai tiền nhân rồi ngừng phân chia[5].
Van Blerkom (1996) tiếp tục khảo sát hoạt động tổ chức vi ống ở những noãn người có bất thường sau tiêm tinh trùng. Trong một số trường hợp, hệ thống vi ống xuất phát từ vùng trung thể tinh trùng phát triển kém, đi kèm sự thất bại của quá trình đưa hai tiền nhân đến gần nhau. Nghiên cứu gợi ý rằng những rối loạn của trung thể có thể liên quan đến thất bại phát triển rất sớm, nhưng không cho phép suy ra tần suất nguyên nhân này trong toàn bộ các chu kỳ ICSI[6].
Fishman và cộng sự (2018) sử dụng nhiều phương pháp khảo sát cấu trúc và ghi hình để mô tả hai dạng trung tử của tinh trùng người: trung tử gần có hình dạng điển hình và trung tử xa mang cấu trúc không điển hình. Trung tử xa vẫn có khả năng thu nhận vật chất quanh trung tử và tham gia các hoạt động liên quan đến phân chia. Phát hiện này điều chỉnh quan niệm trước đây rằng tinh trùng người chỉ còn một trung tử có chức năng. Tuy nhiên, nghiên cứu chưa xác lập một tiêu chí hình thái tinh trùng thường quy có thể dự đoán chính xác tình trạng của các trung tử này[7].
- Cấu trúc nhiễm sắc chất và những thông tin điều hòa được tinh trùng mang theo
Trong quá trình sinh tinh, phần lớn histone được thay thế bằng protamine, giúp DNA được đóng gói chặt trong nhân tinh trùng trưởng thành. Tuy vậy, không phải toàn bộ nucleosome đều bị loại bỏ. Các vùng còn giữ histone có thể chứa những dấu ấn liên quan đến trạng thái điều hòa của DNA. Điều này đặt ra khả năng tinh trùng đóng góp không chỉ trình tự di truyền mà cả những đặc điểm tổ chức nhiễm sắc chất có ý nghĩa đối với các bước phát triển tiếp theo.
Hammoud và cộng sự (2009) phân tích nhiễm sắc chất của tinh trùng người, ghi nhận các nucleosome được giữ lại không phân bố ngẫu nhiên mà tập trung tại một số vùng liên quan đến gen phát triển, gen in dấu và những vùng điều hòa. Một số dấu ấn methyl hóa histone cũng có kiểu phân bố đặc trưng. Đây là bằng chứng trực tiếp về đặc điểm nhiễm sắc chất của tinh trùng người, nhưng nghiên cứu không theo dõi phôi được tạo ra từ từng tinh trùng hay chứng minh một dấu ấn riêng lẻ làm phôi ngừng phát triển[8].
- RNA nhỏ từ tinh trùng: bằng chứng thực nghiệm và giới hạn
Tinh trùng trưởng thành còn mang nhiều phân tử RNA nhỏ (small RNA – sRNA), trong đó có microRNA (miRNA) và những đoạn RNA có nguồn gốc từ RNA vận chuyển (transfer RNA – tRNA). Một số phân tử này được thay đổi thành phần trong quá trình tinh trùng đi qua mào tinh. Vì lượng RNA được đưa vào noãn tương đối nhỏ, vai trò sinh học sau thụ tinh không thể suy ra chỉ từ việc phát hiện chúng trong mẫu tinh trùng; cần có nghiên cứu chức năng hoặc mối liên hệ được kiểm chứng với diễn tiến phát triển phôi.
Trong nghiên cứu trên chuột, Conine và cộng sự (2018) tạo hợp tử bằng ICSI sử dụng tinh trùng lấy ở hai vị trí khác nhau của mào tinh. Những hợp tử từ tinh trùng vùng đầu mào tinh có thay đổi chương trình biểu hiện gen trong giai đoạn trước làm tổ, sau đó làm tổ kém và phần lớn không tiếp tục phát triển sau làm tổ. Khi bổ sung một số RNA nhỏ đặc trưng của tinh trùng vùng đuôi mào tinh, các bất thường phân tử và kiểu hình phát triển được cải thiện trong mô hình này. Kết quả hỗ trợ vai trò chức năng của RNA từ tinh trùng, nhưng không chứng minh RNA nhỏ là nguyên nhân thường gặp khiến phôi người ngừng phân chia trước làm tổ[9].
Trên người, Isacson và cộng sự (2025) giải trình tự RNA nhỏ trong 70 mẫu tinh trùng từ 69 cặp vợ chồng điều trị IVF. Nhóm nghiên cứu ghi nhận một số nhóm RNA nhỏ có liên hệ với mật độ tinh trùng, tỷ lệ thụ tinh hoặc tỷ lệ phôi chất lượng tốt. Đặc biệt, biểu hiện của một số miRNA liên quan thuận chiều với tỷ lệ phôi chất lượng tốt, trong khi một số RNA nhỏ có nguồn gốc ribosome liên quan theo chiều ngược lại. Tuy nhiên, nghiên cứu còn nhỏ, phân tích RNA trên mẫu tinh trùng của cả chu kỳ và chưa cho thấy những phân tử này thực sự được chuyển vào từng hợp tử ở mức có thể làm thay đổi kết cục[10].
- Kết luận
Tinh trùng đóng góp vào sự phát triển phôi không chỉ qua bộ nhiễm sắc thể đơn bội mà còn qua các thành phần tổ chức trung thể, đặc điểm nhiễm sắc chất và RNA nhỏ. Tuy nhiên, mức độ chắc chắn của bằng chứng khác nhau: một số cấu trúc được quan sát trực tiếp ở người, trong khi chức năng của nhiều phân tử điều hòa mới được kiểm chứng chủ yếu trên động vật. Các nghiên cứu lâm sàng về phân mảnh DNA cũng cho kết quả chưa thống nhất giữa các mốc phát triển và kết cục điều trị. Vì vậy, thụ tinh bình thường không loại trừ ảnh hưởng từ tinh trùng, nhưng cũng không đủ cơ sở để quy hiện tượng phôi ngừng phát triển cho riêng yếu tố từ bố. Trong labo IVF, cần kết hợp diễn tiến phôi với thông tin từ cả hai giao tử trước khi cân nhắc khảo sát chuyên sâu.
- Lou L, Xu P, Xie P, et al. High sperm DNA fragmentation is associated with increased embryonic chromosomal abnormality: a retrospective study of 8 years involving 5637 couples undergoing ART. Hum Reprod Open. 2026;2026(4). doi:10.1093/hropen/hoag082.
- Altakroni B, Hunter H, Horne G, Brison DR, Povey AC. DNA damage in prepared semen is negatively associated with semen quality and fertilisation rate in assisted reproduction technology (ART) treatment. Hum Fertil (Camb). 2025;28(1):2442450. doi:10.1080/14647273.2024.2442450.
- Machałowski T, Machałowska J, Gill K, et al. Sperm DNA Fragmentation Impairs Early Embryo Development but Is Not Predictive of Pregnancy Outcomes: Insights from 870 ICSI Cycles. Int J Mol Sci. 2025;26(16):7923. doi:10.3390/ijms26167923.
- Karabulut S, Kutlu P, Korkmaz O, Oria L. Impact of Maternal Age on the Repairing Capacity of Oocytes on Paternal DNA Damage. Reprod Sci. 2025;32(7):2397-2403. doi:10.1007/s43032-025-01911-w.
- Simerly C, Wu GJ, Zoran S, et al. The paternal inheritance of the centrosome, the cell's microtubule-organizing center, in humans, and the implications for infertility. Nat Med. 1995;1(1):47-52. doi:10.1038/nm0195-47.
- Van Blerkom J. Sperm centrosome dysfunction: a possible new class of male factor infertility in the human. Mol Hum Reprod. 1996;2(5):349-354. doi:10.1093/molehr/2.5.349.
- Fishman EL, Jo K, Nguyen QPH, et al. A novel atypical sperm centriole is functional during human fertilization. Nat Commun. 2018;9(1):2210. doi:10.1038/s41467-018-04678-8.
- Hammoud SS, Nix DA, Zhang H, Purwar J, Carrell DT, Cairns BR. Distinctive chromatin in human sperm packages genes for embryo development. Nature. 2009;460(7254):473-478. doi:10.1038/nature08162.
- Conine CC, Sun F, Song L, Rivera-Pérez JA, Rando OJ. Small RNAs Gained during Epididymal Transit of Sperm Are Essential for Embryonic Development in Mice. Dev Cell. 2018;46(4):470-480.e3. doi:10.1016/j.devcel.2018.06.024.
- Isacson S, Karlsson K, Zalavary S, et al. Small RNA in sperm-Paternal contributions to human embryo development. Nat Commun. 2025;16(1):6571. doi:10.1038/s41467-025-62015-2.